La unión de un ligando a su receptor depende principalmente de la complementariedad molecular entre ambos, de la afinidad del ligando por el sitio de unión, de su concentración libre, de la concentración y el estado del receptor, y de las condiciones fisicoquímicas del medio. También influyen la estructura química del ligando, los cambios conformacionales del receptor, la velocidad de asociación y disociación, la presencia de competidores y la regulación celular de los receptores.
Un ligando puede unirse de forma específica y reversible o formar una unión irreversible. Sin embargo, unirse no equivale necesariamente a activar: el ligando puede activar el receptor, bloquear la acción de otro ligando o modificar una actividad que el receptor mantiene por sí solo.
Qué son un ligando y un receptor
Los receptores son macromoléculas que intervienen en la señalización química entre células y en el interior de éstas; pueden encontrarse en la membrana de la superficie celular o en el citoplasma. Las moléculas, como fármacos, hormonas y neurotransmisores, que se unen a un receptor se denominan ligandos.
El ligando es la molécula o el ion que se une a otra de mayor tamaño, casi siempre una proteína, para formar con ella un complejo. De esa unión puede nacer una señal: activar un receptor, poner en marcha una enzima o cambiar el comportamiento de un transportador.
En bioquímica y farmacología, un ligando es una sustancia, por lo general una molécula pequeña, que se une de manera específica a un punto concreto de una biomolécula y forma con ella un complejo. Ese punto recibe el nombre de sitio de unión.
La biomolécula suele ser una proteína, como un receptor, una enzima o un transportador, aunque también puede ser un ácido nucleico. Se llama entidad central a la molécula mayor, y ligando a la que se acopla a ella.
Ligando y receptor no son sinónimos, sino las dos caras de una misma unión. El receptor es la macromolécula que recibe; el ligando, lo que se acopla a ella.
Factores principales que determinan la unión
Complementariedad molecular
Las interacciones entre el receptor y el ligando son típicamente no covalentes. Existe una complementariedad molecular general entre el receptor y el ligando.
Los ligandos se unen a regiones moleculares precisas de las macromoléculas receptoras, denominadas sitios de reconocimiento. El receptor es típicamente una molécula grande, relativamente estacionaria, que contiene un sitio de unión específico para el ligando.
El ligando es típicamente una molécula pequeña, y se difunde por todo el ambiente hasta que se une a un receptor específico. Al unirse al ligando, las propiedades estructurales y/o químicas del receptor se alteran típicamente.
Durante mucho tiempo se recurrió a la imagen de la llave y la cerradura, pero hoy se prefiere hablar de ajuste inducido, porque el sitio de unión y el ligando modifican un poco su forma al encontrarse.
Afinidad
La afinidad mide con qué fuerza queda retenido el ligando. La capacidad de un fármaco para interactuar con un receptor dado depende de la afinidad del fármaco, es decir, de la probabilidad de que ocupe un receptor en un instante dado.
La interacción entre un canal iónico y un ligando se caracteriza por un grado alto de precisión, el cual es dependiente de su afinidad. Esta interacción se asemeja a una configuración de llave-cerradura entre el ligando y el dominio de unión del canal.
La constante de asociación de equilibrio, Kf, tiene unidades de M−1. Un gran valor para Kf significa que el equilibrio favorece el complejo y que existe una alta afinidad del receptor por el ligando.
Un pequeño valor para Kf significa que el equilibrio favorece la separación del receptor y el ligando, y que el receptor tiene una baja afinidad por el ligando.
El marco de referencia típico al describir la afinidad del receptor por el ligando es la constante de disociación, Kd. Un pequeño valor para Kd significa que el equilibrio favorece el complejo y que existe una alta afinidad del receptor por el ligando.
Un gran valor para Kd significa que el equilibrio favorece la separación del receptor y el ligando, y que el receptor tiene una baja afinidad por el ligando.
| Parámetro | Interpretación |
|---|---|
| Kf alto | El equilibrio favorece la formación del complejo y existe alta afinidad. |
| Kf pequeño | El equilibrio favorece la separación del receptor y el ligando. |
| Kd pequeño | Existe alta afinidad por el ligando. |
| Kd grande | Existe baja afinidad por el ligando. |
Estructura química del ligando y del receptor
La afinidad y la actividad de un fármaco dependen de su estructura química. La complementariedad puede depender de la forma, el tamaño, la distribución de cargas y las propiedades químicas de las superficies que entran en contacto.
Las interacciones intermoleculares implican que dos moléculas se reconozcan y se unan entre sí: el ligando y el receptor. La energía de unión se utiliza típicamente para causar un cambio estructural asociado con un evento de comunicación molecular.
La unión suele sostenerse mediante enlaces débiles, como los puentes de hidrógeno, las atracciones eléctricas o las fuerzas de Van der Waals, que se hacen y se deshacen con facilidad. Unas pocas uniones son irreversibles y dejan al ligando fijado de forma permanente.
Concentración del ligando libre
El fármaco no ligado se encuentra disponible para unirse a receptores y alcanzar así su efecto. La concentración de ligando que puede interactuar con el receptor es, por tanto, la concentración libre y no necesariamente la concentración total añadida.
También pueden producirse uniones inespecíficas del fármaco a regiones moleculares no consideradas receptoras, como las proteínas plasmáticas. La unión del fármaco a estos sitios inespecíficos impide que éste se una al receptor y, por lo tanto, lo inactiva.
Para la misma concentración de ligando y receptor añadidos, se producirá una formación más compleja con un valor menor de Kd. En condiciones de equilibrio, el ligando se reparte entre la forma libre y la forma unida.
Concentración y densidad del receptor
La densidad basal de receptores y la eficiencia de los mecanismos estímulo-respuesta no son iguales en todos los tejidos. Por eso, una misma concentración de ligando puede producir respuestas diferentes según el tejido en el que actúe.
El número y la afinidad de unión de los receptores pueden aumentar, lo que se denomina ascenso regulado, o disminuir, lo que se denomina descenso regulado, en función de los fármacos, el envejecimiento, las mutaciones genéticas y las enfermedades.
La capacidad de unión a receptores se ve afectada por factores externos y por mecanismos reguladores intracelulares. El número de sitios disponibles y su capacidad de reconocer al ligando pueden cambiar con el estado funcional de la célula.
Tiempo de residencia
El efecto farmacológico también está determinado por la duración de tiempo que el complejo fármaco-receptor persiste, denominada tiempo de residencia.
El tiempo de vida del complejo fármaco-receptor se ve afectado por procesos dinámicos, como los cambios de conformación, que controlan la velocidad de asociación y disociación de los fármacos del objetivo.
Un mayor tiempo de residencia explica un efecto farmacológico prolongado. Un mayor tiempo de residencia puede ser una desventaja potencial cuando prolonga la toxicidad de un fármaco, pero tiene la ventaja potencial de una mayor eficacia y flexibilidad de dosificación.
Para algunos receptores, la ocupación transitoria por los fármacos produce el efecto farmacológico deseado, mientras que la ocupación prolongada provoca toxicidad.
Equilibrio entre asociación y disociación
La unión de un ligando a un receptor se trata como un equilibrio químico. En equilibrio, la tasa de formación del complejo receptor-ligando es igual a la velocidad de disociación.
El complejo puede formarse cuando el ligando libre se encuentra con un receptor libre y puede disociarse cuando el complejo vuelve a separarse en receptor y ligando libres. La estabilidad observada depende de la relación entre ambas velocidades.
Existen dos métodos generales para estudiar las interacciones receptor-ligando: la termodinámica de equilibrio y la cinética de asociación y disociación.
La constante de disociación, Kd, relaciona la concentración del receptor libre, la concentración del ligando libre y la concentración del complejo receptor-ligando. Si se conocen tres de estas variables, puede resolverse la cuarta.
Qué significa una Kd baja o alta
Una Kd baja indica que una concentración relativamente pequeña de ligando libre puede mantener una fracción importante de receptores ocupados. Una Kd alta indica que se requiere una concentración mayor para alcanzar el mismo grado de ocupación.
La concentración de ligando libre que da como resultado la mitad del valor máximo de complejo receptor-ligando es igual al valor de Kd.
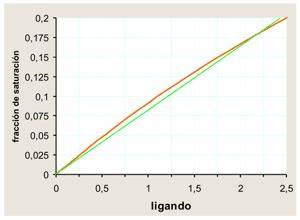
La fracción de sitios receptores unidos depende de la concentración de ligando libre y de la Kd. Cuando aumenta la concentración de ligando, aumenta la fracción de receptores ocupados hasta aproximarse a la saturación.
Saturación de los receptores
Por lo general, el experimento de unión al ligando se establece de manera que la concentración total de receptor se mantenga constante y la concentración de complejo receptor-ligando se controle como una función de la concentración de ligando.
Representar la concentración de complejo receptor-ligando frente a la concentración de ligando libre produce una hipérbola rectangular. La asíntota de la curva da el valor de la concentración total de receptor.
La concentración de ligando libre que produce la mitad del valor máximo de complejo receptor-ligando es igual al valor de Kd. El valor máximo refleja la capacidad de unión disponible, aunque puede verse afectado por la presencia de varios tipos de sitios.
Cinética: velocidad de asociación y disociación
La unión no depende únicamente de la afinidad en el equilibrio. También depende de la velocidad con la que el ligando se asocia al receptor y de la velocidad con la que se disocia.
Los cambios de conformación del receptor y del ligando pueden controlar la velocidad de asociación y disociación de los fármacos del objetivo. Dos complejos pueden presentar una afinidad global parecida y, sin embargo, diferir en el tiempo durante el que permanecen unidos.
Una asociación rápida puede favorecer la ocupación del receptor cuando el ligando aparece brevemente. Una disociación lenta puede prolongar la señal o el efecto farmacológico, aunque la unión prolongada también puede mantener una respuesta no deseada.
Especificidad y selectividad
La especificidad explica por qué un ligando reconoce unas dianas y no otras. La selectividad es el grado en que un fármaco actúa sobre un sitio dado en relación con otros sitios.
Muy pocos fármacos, si es que existe alguno, son absolutamente específicos para un receptor o un subtipo de receptor concreto, pero la mayoría presenta una relativa selectividad.
La selectividad depende en gran medida de la unión fisicoquímica del fármaco a los receptores celulares. Cada ligando puede interactuar con muchos subtipos de receptores.
El sitio de unión del fármaco y el del agonista endógeno, como una hormona o un neurotransmisor, pueden coincidir o no. En algunas ocasiones, los agonistas que se unen a un punto adyacente o distinto se denominan agonistas alostéricos.
Unión específica, inespecífica, reversible e irreversible
Unión específica
La unión específica se produce cuando el ligando reconoce un sitio molecular concreto del receptor gracias a la complementariedad entre ambas estructuras.
Los receptores químicos de las células han sido definidos como estructuras moleculares a las cuales se unen específicamente otras moléculas consideradas como mensajeros químicos, como neurotransmisores, hormonas y otras moléculas neuroactivas.
Unión inespecífica
La unión inespecífica se produce cuando el ligando se asocia a moléculas o regiones que no constituyen el receptor funcional. Un ejemplo es la unión a proteínas séricas.
La unión del fármaco a estos sitios inespecíficos reduce la fracción libre del fármaco y puede impedir que alcance los receptores capaces de producir el efecto.
Unión reversible
Casi todas las uniones receptor-ligando son reversibles. Se sostienen mediante interacciones no covalentes, por lo que el ligando puede separarse del receptor.
Los antagonistas reversibles se separan con facilidad de su receptor. En el antagonismo competitivo reversible, el agonista y el antagonista forman enlaces de corta duración con el receptor, y finalmente se alcanza un estado estacionario entre agonista, antagonista y receptor.
Unión irreversible
Las uniones irreversibles forman un enlace químico estable, permanente o casi permanente con su receptor, por ejemplo mediante alquilación.
Los antagonistas seudoirreversibles se disocian lentamente del receptor. Su efecto puede persistir aunque disminuya la concentración libre del compuesto.
El ligando puede activar, bloquear o reducir la actividad del receptor
Un ligando puede activar o inactivar al receptor; a su vez, la activación puede incrementar o reducir la actividad de una determinada función celular.
Agonistas
Los agonistas activan receptores para producir la respuesta deseada. Los agonistas convencionales aumentan la proporción de receptores activados.
Muchas hormonas y neurotransmisores, como la acetilcolina, la histamina y la noradrenalina, actúan como agonistas. También actúan como agonistas diversos fármacos, como la morfina, la fenilefrina, el isoproterenol, las benzodiazepinas y los barbitúricos.
Los agonistas inversos estabilizan la conformación inactiva del receptor y actúan de forma parecida a los antagonistas competitivos. Algunos ligandos pueden reducir la actividad que el receptor mantiene incluso en ausencia de un agonista convencional.
Antagonistas
Los antagonistas impiden la activación del receptor. Cuando bloquean la acción de una sustancia que normalmente aumenta la función celular, los antagonistas provocan su disminución.
Los antagonistas aumentan la función celular cuando bloquean la acción de una sustancia que normalmente disminuye la función celular. Por tanto, el efecto de un antagonista depende de la función que ejercía el ligando bloqueado.
En el antagonismo competitivo, la unión del antagonista al receptor impide la unión del agonista. Este antagonismo puede ser contrarrestado aumentando la concentración del agonista.
En el antagonismo no competitivo, el agonista y el antagonista pueden encontrarse unidos simultáneamente, pero la unión del antagonista reduce o impide los efectos del agonista.
La naloxona, un antagonista de los receptores opioides estructuralmente parecido a la morfina, administrada poco tiempo antes o después de administrar morfina bloquea los efectos de esta última.
Agonistas parciales
Con frecuencia, los análogos estructurales de las moléculas agonistas suelen presentar propiedades agonistas y antagonistas; estos fármacos se denominan agonistas parciales, de baja eficacia, o agonistas-antagonistas.
La pentazocina activa los receptores de opioides, pero impide su activación por parte de otros opioides. Por ello, la pentazocina produce efectos propios de los opioides, pero enmascara los efectos de otros opioides si son administrados cuando la pentazocina aún se encuentra unida al receptor.
Un fármaco que actúe como agonista parcial en un tejido puede actuar en otro como agonista puro. La respuesta depende de la eficacia intrínseca del ligando y de la capacidad de respuesta del tejido.
Eficacia intrínseca y respuesta celular
La eficacia intrínseca, también llamada actividad intrínseca, es el grado en que un ligando activa a un receptor y conduce a una respuesta celular.
La afinidad indica la capacidad de un ligando para unirse, mientras que la eficacia intrínseca indica lo que ocurre después de la unión. Un ligando puede presentar alta afinidad y baja eficacia, o baja afinidad y una eficacia suficiente para generar una respuesta.
La respuesta final no depende exclusivamente del número de receptores ocupados. Las funciones fisiológicas, como la contracción y la secreción, suelen estar reguladas por múltiples mecanismos mediados por receptores.
Entre la interacción molecular inicial fármaco-receptor y la respuesta final del tejido o del órgano pueden sucederse varios pasos, como el acoplamiento al receptor y la participación de múltiples sustancias intracelulares que actúan como segundos mensajeros.
Tipo de receptor y localización celular
Receptores de membrana
Los receptores químicos se pueden ubicar en la membrana plasmática, en la cual se insertan atravesándola. Se han definido para ellos dominios de membrana y también dominios situados a ambos lados de la membrana.
El dominio del lado externo corresponde al sitio de unión para los mensajeros que vienen de otras células, situación que define a los llamados heterorreceptores. Si a ese sitio se unen mensajeros que vienen de la propia célula, se definen los llamados autorreceptores.
Receptores intracelulares
Los receptores también pueden ubicarse en el interior de la célula. Son los receptores intracelulares y se encuentran en el citoplasma o en el núcleo.
Sobre ellos actúan mensajes que, por su naturaleza química, pueden atravesar la membrana plasmática, como las hormonas esteroidales, las tiroideas y los neuroesteroides.
Los receptores intracelulares se ubican en el interior de la célula y su activación lleva a un aumento de mRNA específicos y de sus correspondientes proteínas.
Receptores ionotrópicos
Los receptores-canales, receptores ionotrópicos o canales iónicos regulados por un ligando son proteínas que tienen un sitio de unión a un ligando específico y presentan, al mismo tiempo, un poro o canal en su estructura.
Los canales iónicos activados por ligando, también llamados receptores ionotrópicos, son proteínas integrales de la membrana celular que se activan al unirse con moléculas de señalización específicas conocidas como ligandos.
Esta interacción se lleva a cabo en un dominio de unión del canal, facilitando el paso de iones a través del poro del canal. El movimiento de los iones sigue el gradiente electroquímico, sin requerir de costo energético.
En este grupo se ubican los receptores nicotínicos, los GABAA y los receptores ionotrópicos de glutamato. La unión del ligando induce cambios conformacionales en los canales, permitiendo el paso de iones a través de su poro.
Receptores unidos a enzimas
Los receptores unidos a enzimas son proteínas que presentan un sitio de unión a un ligando específico en su dominio extracelular y hacia el citoplasma presentan actividad enzimática.
Generalmente se comportan como una proteína quinasa capaz de inducir la fosforilación de otras proteínas intracelulares y cambiar, entonces, su funcionamiento. En este grupo se ubican los receptores de factores de crecimiento.
Receptores unidos a proteína G
Los receptores unidos a proteína G pertenecen a una familia de proteínas cuya estructura cruza siete veces el espesor de la membrana, por lo que se denominan receptores transmembrana 7.
Cuando son activados por su ligando específico en el dominio extracelular, su respuesta se realiza a través del dominio intracelular y consiste en activar el complejo molecular de la proteína G con la cual están relacionados.
Se han identificado cientos de receptores unidos a proteína G. Por intermedio de esta proteína se generan segundos mensajeros como el cAMP.
En este grupo se ubican los receptores β-adrenérgicos, los receptores muscarínicos de la acetilcolina, los receptores metabotrópicos de glutamato y los receptores de hormonas peptidérgicas.
Canales iónicos activados por ligando
Estructura del canal
Los canales iónicos activados por ligando son proteínas incrustadas en la bicapa lipídica de la membrana celular y están compuestos típicamente por tres a cinco subunidades.
Cada subunidad comprende cadenas de polipéptidos que atraviesan la membrana múltiples veces. Dependiendo de la secuencia de aminoácidos, que puede ser idéntica o variable en cada subunidad, las subunidades se organizan en homomultímeros o heteromultímeros.
La estructura general del canal involucra dos dominios funcionales diferentes: el dominio de unión al ligando y el dominio transmembrana.
Dominio de unión al ligando
El dominio de unión al ligando representa la región específica de la proteína en donde el ligando interactúa con la subunidad de unión.
Usualmente está situado en la superficie del canal y orientado hacia el espacio extracelular, facilitando el acceso al ligando químico.
Poro del canal
El poro del canal es la estructura que atraviesa la membrana, formada por subunidades de proteínas. La organización de las subunidades transmembrana y sus segmentos polipeptídicos forma un poro conductor de iones en el centro de la estructura.
La composición y el número de segmentos que atraviesan la membrana varían a lo largo de los diferentes tipos de receptores ionotrópicos. El poro del canal sirve como la vía mediante la cual los iones fluyen dentro y fuera de la célula.
Selectividad del canal
La selectividad de los canales iónicos activados por ligando se extiende tanto a los ligandos que los activan como a los iones que pueden atravesarlos.
Aunque la mayoría de los canales presentan una especificidad alta para sus ligandos y para el tipo de iones que transmiten, aniones o cationes, generalmente no son selectivos para un ion en específico.
Los receptores selectivos de cationes típicamente exhiben un recubrimiento con carga negativa en la pared del poro, mientras que los receptores selectivos de aniones presentan un recubrimiento con carga positiva.
El radio atómico y la carga eléctrica de los iones influyen en la selectividad de los canales. Los iones grandes pueden tener problemas para atravesar poros pequeños debido a su tamaño.
Los iones con radios atómicos más pequeños presentan una mayor densidad de carga, lo que resulta en una atracción más fuerte a las moléculas de agua y la formación de una capa de hidratación. Esta capa influye aún más en su capacidad para atravesar el canal.
Generalmente, a menor diámetro del poro, mayor selectividad del canal. Algunos iones hidratados tienen que eliminar moléculas de agua para poder obtener el tamaño adecuado para pasar por el canal.
Permeabilidad y respuesta eléctrica
Al unirse el ligando correcto, el canal asociado atraviesa un cambio conformacional, facilitando el pasaje de iones por medio de la membrana celular.
En el sistema nervioso, los iones predominantes que atraviesan la membrana celular son los cationes de sodio, calcio y potasio, así como los aniones de Cl−.
Los canales iónicos activados por ligando pueden mostrar selectividad catiónica o aniónica, dependiendo de la carga eléctrica que recubre el poro del canal. Sin embargo, muchos canales no son exclusivamente selectivos para un ion en específico.
El receptor de N-metil-D-aspartato, también conocido como NMDAR, permite el flujo de iones de Na+, Ca2+ y K+.
La activación de receptores selectivos de cationes comúnmente ocasiona una acumulación intracelular de iones positivos que acerca el potencial de membrana hacia el umbral. Por lo tanto, los canales selectivos de cationes son considerados excitatorios.
Los receptores selectivos de aniones, como los que se unen al GABA, son considerados inhibitorios. La entrada de aniones eleva la concentración de iones negativos dentro de la célula, provocando la hiperpolarización de la membrana.
Ejemplos de ligandos ionotrópicos
Los ligandos que se unen y activan los canales iónicos activados por ligando son moléculas químicas, y los neurotransmisores son sus representantes principales en las sinapsis del sistema nervioso.
Estas moléculas abarcan un diverso rango de sustancias, incluyendo aminoácidos, aminas, acetilcolina, péptidos, purinas, bases y lípidos.
El glutamato es el neurotransmisor más prevalente entre las sinapsis neuronales y tiene afinidad por los canales selectivos de cationes. Cuando el neurotransmisor se une al receptor, desencadena la apertura del canal y la entrada de iones Na+.
El GABA sirve como el principal neurotransmisor inhibidor en el sistema nervioso central, con afinidad por los canales selectivos de aniones. Tras la unión del GABA a su receptor ionotrópico, el canal asociado se activa, facilitando la permeación de los aniones de cloruro.
La acetilcolina actúa como un neurotransmisor que puede activar canales iónicos en la membrana postsináptica. Los receptores ionotrópicos de acetilcolina, también conocidos como receptores nicotínicos, sirven como canales no selectivos de cationes.
Receptores ionotrópicos y metabotrópicos
Los receptores ionotrópicos y metabotrópicos son los dos tipos principales de receptores de ligando encontrados en la superficie de las neuronas, con cada tipo desempeñando papeles distintos en la señalización celular.
Los receptores ionotrópicos son canales iónicos activados por ligando de acción rápida que controlan directamente el paso de iones al momento de unirse con neurotransmisores.
Cuando un neurotransmisor se une a un receptor ionotrópico, el receptor atraviesa un cambio conformacional que abre un canal iónico, permitiendo que los iones fluyan dentro o fuera de la célula.
En contraste, los receptores metabotrópicos son receptores de acción más lenta que regulan indirectamente los canales iónicos por medio de vías de señalización intracelular.
Al unirse a un neurotransmisor, los receptores metabotrópicos activan una serie de cascadas de señalización intracelular en las que intervienen segundos mensajeros y proteínas quinasas.
Estas cascadas ocasionan finalmente cambios en la expresión génica, la actividad enzimática o la función de los canales iónicos. Mientras que los receptores ionotrópicos modulan respuestas rápidas y transitorias, los receptores metabotrópicos están implicados en efectos más prolongados y regulatorios.
Influencia del tejido y de la señalización intracelular
Las funciones fisiológicas suelen estar reguladas por múltiples mecanismos mediados por receptores. Entre la interacción molecular inicial fármaco-receptor y la respuesta final del tejido o del órgano pueden sucederse varios pasos.
Los receptores activados regulan, ya sea de forma directa o indirecta, procesos bioquímicos celulares como la conductancia iónica, la fosforilación proteica, la transcripción del ADN y la actividad enzimática.
Por consiguiente, en muchas ocasiones pueden emplearse distintas moléculas con actividad farmacológica para obtener la misma respuesta deseada. El resultado depende de la vía de señalización que conecte la unión inicial con la función celular final.
La señal generada por un receptor puede amplificarse mediante segundos mensajeros y proteínas quinasas. También puede limitarse mediante mecanismos de desensibilización, inactivación del receptor o eliminación del ligando.
Regulación del número y de la afinidad de los receptores
Ascenso y descenso regulado
El número y la afinidad de unión de los receptores pueden aumentar o disminuir en función de los fármacos, el envejecimiento, las mutaciones genéticas y las enfermedades.
El ascenso y el descenso regulado de los receptores influye en la adaptación a los fármacos, como la desensibilización, la taquifilaxia, la tolerancia, la resistencia adquirida y la hipersensibilidad al cesar la administración.
La clonidina regula negativamente los receptores alfa-2-adrenérgicos; por eso, la interrupción brusca de su administración puede provocar crisis hipertensivas.
El tratamiento crónico con beta-bloqueantes regula positivamente la densidad de receptores beta-bloqueantes; por ello, su interrupción brusca puede dar lugar a una hipertensión grave o taquicardia.
Desensibilización y tolerancia
La exposición persistente a un ligando puede disminuir la respuesta celular aunque el ligando continúe ocupando los receptores. Esta adaptación puede afectar al número de receptores, su afinidad o la eficiencia de los mecanismos estímulo-respuesta.
La reducción de la respuesta puede aparecer rápidamente, como en la taquifilaxia, o desarrollarse de forma gradual durante tratamientos prolongados, como en la tolerancia.
La retirada brusca puede producir una respuesta exagerada cuando el organismo ha aumentado la densidad de receptores o la sensibilidad de las vías de señalización durante la exposición crónica a un antagonista.
Competencia entre ligandos
Dos ligandos pueden competir por el mismo sitio de unión. En el antagonismo competitivo, la ocupación del receptor por un ligando reduce la posibilidad de que otro ligando se una al mismo sitio.
El antagonismo competitivo reversible puede contrarrestarse aumentando la concentración del agonista, porque el agonista y el antagonista forman enlaces de corta duración con el receptor.
La competencia también puede producirse entre ligandos con estructuras distintas si ambos reconocen el mismo sitio o si sus sitios de unión se superponen.
Los agonistas alostéricos se unen a un punto adyacente o distinto del sitio principal. Esa unión puede modificar la conformación del receptor y aumentar o reducir la acción de otro ligando.
Ligandos endógenos y exógenos
Por su procedencia, los ligandos se dividen en endógenos y exógenos. Los endógenos los fabrica el propio organismo: hormonas, neurotransmisores, factores de crecimiento y metabolitos.
Los exógenos llegan de fuera, y entre ellos figuran la mayoría de los fármacos y buena parte de los tóxicos.
Otra manera de ordenarlos atiende a la diana que buscan. Hay ligandos de receptores de membrana, de receptores situados dentro de la célula, de enzimas y de la propia molécula de ADN.
Ligando, receptor y sustrato
Tampoco conviene confundir ligando con sustrato. El sustrato es el ligando que una enzima transforma en producto, de modo que todo sustrato es un ligando, pero no al revés.
Un inhibidor se une a la enzima sin que ésta lo transforme. La diferencia está en el desenlace: el sustrato se transforma, mientras que otros ligandos, como un inhibidor, solo se acoplan.
En las enzimas, el sitio activo reconoce al sustrato mediante interacciones que también dependen de la complementariedad, la afinidad, la concentración y la conformación molecular.
Medición experimental de la unión
Ensayos de unión
En general, se trabaja con el ligando purificado, mientras que el receptor forma parte de una muestra compleja, y se varía el ligando para determinar la presencia, cantidad y características del receptor.
Un ensayo de unión puede utilizar un ligando marcado y un ligando no marcado. El equilibrio o la cinética se rige por la suma de ligando marcado y no marcado, porque ambos tienen la misma identidad química aunque solo uno sea detectable.
En todo ensayo de unión es esencial disponer de un método para separar el ligando unido del libre. La medición debe distinguir la fracción que forma complejo con el receptor de la fracción que permanece libre.
Curvas de saturación
La representación más directa es la concentración de ligando unido frente a la concentración de ligando libre. La curva resultante permite estimar la Kd y la capacidad máxima de unión.
La curva de unión o isoterma de unión tiene forma de hipérbola rectangular al representar el ligando unido frente al ligando libre.
La asíntota de la curva da el valor de la concentración total de receptor. La concentración de ligando libre que produce la mitad del valor máximo de unión es igual al valor de Kd.
Representación de Scatchard
La representación de B/F, ligando unido dividido por ligando libre, frente a B, ligando unido, proporciona una recta cuya pendiente negativa es igual a la constante de afinidad.
La abscisa en el origen es igual a la concentración de sitios de unión. La gráfica de Scatchard es útil para obtener información visual sobre la afinidad y la concentración de sitios de unión en el receptor.
La gráfica también puede detectar la presencia de varios tipos de receptor o de una unión inespecífica, que corresponde a una unión de baja afinidad no saturable.
El ajuste por regresión no lineal es mucho más correcto desde el punto de vista matemático y estadístico, pues la transformación de los datos distorsiona su error experimental.
Ensayos de desplazamiento
Los ensayos de desplazamiento utilizan una menor cantidad de ligando marcado, que se mantiene fija, y cantidades crecientes de ligando frío.
La curva de desplazamiento de la unión frente a la concentración de ligando frío es sigmoidal y decreciente.
En las curvas de desplazamiento homólogo, el ligando frío es el mismo que el radioligando. En las curvas de desplazamiento heterólogo, el ligando frío es diferente al marcado.
Los ensayos de unión competitiva se usan en especial para estudiar la potencia de diversos análogos o inhibidores, que se calcula a partir del punto central de la curva en forma de concentración inhibidora 50%, o IC50.
Ejemplo de unión entre colchicina y tubulina
La colchicina es un alcaloide obtenido de la planta Colchicum autumnale, o azafrán silvestre, que se une específicamente a la proteína tubulina, principal componente de los microtúbulos.
Dicha unión evita la polimerización de la tubulina para formar microtúbulos. Esto permite la aplicación experimental de la colchicina para estudiar procesos celulares dependientes de los microtúbulos.
En un ensayo de unión, la colchicina marcada se incuba con un extracto que contiene tubulina hasta alcanzar el equilibrio. Después se añade carbón activo, que fija la colchicina libre.
Tras centrifugar, se recoge el sobrenadante, que contiene la colchicina unida a tubulina, y se mide la señal correspondiente. La diferencia entre la señal total y la señal unida permite estimar la fracción libre.
El análisis de los datos mediante una curva de saturación, una representación de Scatchard o una regresión no lineal permite estimar la Kd y la Bmáx.
Cuando la fracción de ligando unido es muy baja, casi no hay diferencia entre el ligando libre y el ligando total. Además, si no se alcanza la saturación, la estimación de Bmáx no es fiable.
Por qué la unión no determina por sí sola el efecto
La unión de un ligando al receptor es el primer paso de una cadena de acontecimientos. La respuesta final depende de la conformación que adopta el receptor, de su acoplamiento a proteínas o canales y de la eficacia de las vías intracelulares.
Un ligando puede ocupar muchos receptores y producir una respuesta pequeña si su eficacia intrínseca es baja. Otro ligando puede ocupar menos receptores y producir una respuesta intensa si activa eficazmente el mecanismo estímulo-respuesta.
La misma unión puede producir respuestas distintas en tejidos diferentes porque la densidad basal de receptores, los subtipos presentes y la eficiencia de los mecanismos intracelulares no son iguales en todos los tejidos.
Por consiguiente, la unión de un ligando a su receptor depende de una combinación de afinidad, concentración libre, complementariedad estructural, cinética, disponibilidad del receptor, competencia, regulación celular y eficacia de la señalización posterior.