La internalización del complejo ligando-receptor es el proceso mediante el cual un receptor de la membrana plasmática, después de unirse a su ligando y transmitir la señal, es incorporado al interior celular en vesículas endocíticas. El complejo internalizado puede dirigirse a los endosomas y seguir dos destinos principales: la degradación proteolítica en los lisosomas o el reciclaje y retorno del receptor a la membrana plasmática.
Este mecanismo regula la intensidad y la duración de la señalización celular. En el caso del receptor del factor de crecimiento epidérmico, EGFR, la internalización disminuye la señal mitogénica y contribuye a prevenir la proliferación celular incontrolada, aunque el receptor internalizado también puede continuar transmitiendo señales desde compartimentos intracelulares antes de ser degradado o reciclado.
El complejo ligando-receptor y la señalización celular
En cada organismo existen distintos tipos de señales químicas que reciben el nombre de ligandos y forman complejos con receptores específicos. Cada tipo celular es sensible a distintas señales y cada interacción ligando-receptor está asociada a una función particular. Cada célula responde a un conjunto de señales.
El complejo ligando-receptor transmite el mensaje al interior de la célula e inicia un camino que lleva a la ejecución de una respuesta biológica específica. Por este proceso completo se transduce la señal.
La comunicación celular puede establecerse de distintas formas que incluyen: a) la comunicación paracrina: la señal actúa sobre células vecinas; b) endocrina: la señal viaja por el torrente sanguíneo y alcanza células lejanas; c) autocrina: la señal llega a la misma célula de la cual salió; d) neurotransmisión: la señal es liberada por la célula emisora al espacio sináptico, donde es captada por la célula receptora; e) contactos célula-célula: la señal permanece anclada a la membrana de la célula emisora mientras interactúa con la célula receptora y f) mediante gaps: la señal se difunde desde la célula emisora a la receptora.
La señalización celular comprende una cascada de procesos químicos conectados entre sí que participan en la comunicación entre todas las células. Procesos importantes que abarcan la comunicación celular, son como en la respuesta inmune, síntesis de proteínas, activación de la glucogenólisis, gluconeogénesis, apoptosis, participan de la formación de tejidos glándulares, epiteliales hasta uniones celulares.
La comunicación intercelular requiere de un receptor que se encarga de recibir el ligando, que puede proceder del exterior de la célula, o del propio citoplasma celular como subproducto de una cadena de reacciones. Esta señalización celular se puede dar por medio de la participación de ligandos específicos que van a estimular receptores específicos.
Tipos de receptores y relación con la internalización
Los receptores son moléculas proteicas en la célula diana o en su superficie que se unen a ligandos. Existen dos tipos de receptores: receptores internos y receptores de superficie celular.
Los receptores se pueden dividir en 2 categorías principales: receptores de superficie celular (transmembrana) y receptores intracelulares.
Los receptores de superficie celular, también conocidos como receptores transmembrana, son proteínas de superficie celular, ancladas a la membrana o integrales que se unen a moléculas de ligando externas. Este tipo de receptor abarca la membrana plasmática y realiza la transducción de señales, convirtiendo una señal extracelular en una señal intracelular.
Los receptores de superficie celular también se denominan proteínas o marcadores específicos de la célula porque son específicos de tipos celulares individuales. Cada receptor de superficie celular tiene tres componentes principales: un dominio externo de unión a ligando (dominio extracelular), una región hidrofóbica que abarca la membrana y un dominio intracelular dentro de la célula.
Los ligandos que interactúan con los receptores de la superficie celular no tienen que ingresar a la célula a la que afectan. Sin embargo, el propio receptor unido al ligando puede ser incorporado mediante endocitosis, lo que permite controlar la disponibilidad del receptor en la superficie y la duración de la señal.
Receptores intracelulares
Ciertas moléculas pequeñas y/o hidrófobas atraviesan la membrana celular y se unen a receptores internos. Estos complejos suelen unirse al DNA y actuar como factores de transcripción.
Los receptores internos, también conocidos como receptores intracelulares o citoplásmicos, se encuentran en el citoplasma de la célula y responden a moléculas de ligando hidrófobo que son capaces de viajar a través de la membrana plasmática.
Cuando el ligando se une al receptor interno, un cambio conformacional expone un sitio de unión al ADN en la proteína. El complejo ligando-receptor se mueve hacia el núcleo, se une a regiones reguladoras específicas del ADN cromosómico y promueve el inicio de la transcripción.
Los glucocorticoides y los mineralocorticoides, las hormonas sexuales y las hormonas tiroideas son ejemplos de ligandos que se unen a receptores intracelulares que actúan como factores de transcripción. Todos los receptores intracelulares tienen una zona de unión al DNA y otra de reconocimiento del ligando.
Las proteínas chaperonas mantienen el plegamiento específico de los receptores que se encuentran libres en el citoplasma. Luego de la unión de una hormona al receptor, el complejo se transloca al núcleo, se separa de la chaperona y forma un dímero con otro complejo similar.
Estos dímeros interactúan con secuencias específicas del DNA, disparando la transcripción génica. Los receptores internos pueden influir directamente en la expresión génica sin tener que pasar la señal a otros receptores o mensajeros.
Receptores de superficie celular
Hay tres categorías generales de receptores de superficie celular: receptores unidos a canales iónicos, receptores unidos a proteínas G y receptores ligados a enzimas.
Los receptores ionotrópicos se encuentran en la membrana celular y permiten el pasaje de iones al interior o exterior de la célula. En general, responden a neurotransmisores y controlan procesos de contracción muscular y transferencia neuronal de información.
Algunos receptores de membrana están acoplados a proteínas G, que intermedian la interacción entre aquellos y otras proteínas de membrana. La cantidad de ligandos que se une a este tipo de receptores es enorme, entre ellos, las hormonas adrenalina, glucagón, adrenocorticotrofina, luteinizante, foliculoestimulante y angiotensina II.
Existen dos tipos de receptores de membrana asociados con enzimas: los que se activan y funcionan como enzimas y los que activan enzimas del lado interno de la membrana celular. En la gran mayoría de los casos, la actividad enzimática asociada es de proteincinasa.
Receptores ligados a enzimas y EGFR
Los receptores ligados a enzimas son receptores de superficie celular con dominios intracelulares que están asociados con una enzima. En algunos casos, el dominio intracelular del receptor en sí es una enzima o el receptor ligado a enzimas tiene un dominio intracelular que interactúa directamente con una enzima.
Los receptores ligados a enzimas normalmente tienen grandes dominios extracelulares e intracelulares, pero la región que abarca la membrana consiste en una única región alfa-helicoidal de la cadena peptídica.
El receptor tirosina quinasa transfiere grupos fosfato a moléculas de tirosina. Las moléculas de señalización se unen al dominio extracelular de dos receptores cercanos de tirosina quinasa, que luego se dimerizan.
Luego se agregan fosfatos a los residuos de tirosina en el dominio intracelular de los receptores y luego pueden transmitir la señal al siguiente mensajero dentro del citoplasma.
El ligando se une a los receptores tirosina quinasa individuales, lo que conduce a:
- Dimerización: 2 receptores tirosina quinasa vecinos se unen.
- Autofosforilación: Los dímeros se fosforilan entre sí.
- 1 monómero de receptor tirosina quinasa transfiere un grupo fosfato del adenosín trifosfato al otro monómero de receptor tirosina quinasa, ahora conocido como fosfotirosina.
- Las fosfotirosinas actúan como sitios de acoplamiento para otras proteínas involucradas en la cascada de transducción de señales.
La actividad tirosina quinasa del EGFR es uno de los mecanismos principales que se activan después de la unión del ligando. Además de los mecanismos que regulan de forma rápida la actividad tirosina quinasa del EGFR, mencionados anteriormente, existen otros mecanismos de desensibilización lenta del receptor que implican la internalización y la degradación proteolítica del mismo.
Inicio de la internalización del complejo ligando-receptor
Luego de la interacción entre el ligando y el receptor, se produce la formación de varios complejos ligando-receptor en la membrana celular. Los dominios catalíticos permiten la fosforilación recíproca en residuos de tirosina, serina o treonina, según de qué receptor se trate.
Esta autofosforilación es seguida por el reclutamiento de moléculas señalizadoras citosólicas, que transmiten el mensaje al interior de la célula. La fosforilación en tirosina de estas proteínas modifica su conformación.
Cuando se trata de enzimas, la fosforilación les cambia la actividad. En el caso de proteínas sin actividad enzimática, la fosforilación les permite la interacción con otras proteínas. Por ambos mecanismos se transduce la señal del ligando al interior celular.
Así, una vez que el receptor ha transmitido las correspondientes señales, el complejo ligando-receptor es internalizado hacia los endosomas primarios, principalmente mediante su inclusión en vesículas recubiertas de clatrina, aunque parecen existir otras vías independientes de éstas.
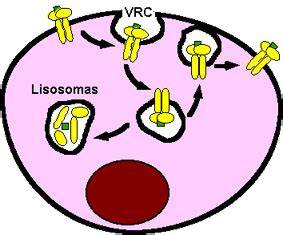
La internalización del EGFR mediada por vesículas recubiertas de clatrina es un proceso complejo en el que intervienen las proteínas adaptadoras AP-1 y AP-2 (por adaptor proteins 1 y 2) y la proteína Eps15 (por epidermal growth factor pathway substrate 15) que juega un papel estabilizador en dicho proceso.
La endocitosis permite retirar de la superficie celular receptores que ya han sido activados. De esta forma, disminuye la cantidad de receptores disponibles para unirse a nuevos ligandos y se limita la intensidad de la respuesta celular.
Endocitosis mediada por clatrina
La clatrina participa en la formación de vesículas que invaginan la membrana plasmática y transportan el complejo receptor-ligando hacia el interior celular. Las proteínas adaptadoras conectan los receptores con la maquinaria de revestimiento y contribuyen a seleccionar las proteínas que serán incorporadas en la vesícula.
La internalización del EGFR mediada por vesículas recubiertas de clatrina es un proceso complejo en el que intervienen las proteínas adaptadoras AP-1 y AP-2 y la proteína Eps15, que juega un papel estabilizador en dicho proceso.
Además, durante la internalización del EGFR se produce la ubiquitinación del mismo. En este proceso parece estar implicada la proteína c-Cbl que es fosforilada en residuos de tirosina tras la activación del receptor y aparece en los endosomas en los que se internaliza el mismo.
La unión de la proteína c-Cbl a la región carboxilo terminal del receptor depende de la actividad tirosina quinasa de éste. La ubiquitinación actúa como una señal molecular relacionada con la clasificación y el procesamiento intracelular del receptor internalizado.
Participación de c-Cbl y las tirosinas del receptor
Se ha demostrado que la internalización y degradación del EGFR se ve afectada cuando se producen mutaciones en las tirosinas transfosforilables, lo cual demuestra la importancia de estos residuos en el procesamiento del receptor.
También se ha descrito un dominio específico en la región citosólica del receptor implicado en su internalización, y la importancia de la presencia de cargas negativas cercanas a la Tyr992 del receptor en este proceso.
La activación del receptor, su fosforilación y la posterior unión de proteínas reguladoras coordinan el paso desde la señalización en la membrana hacia la incorporación del complejo en vesículas endocíticas.
Tráfico hacia los endosomas
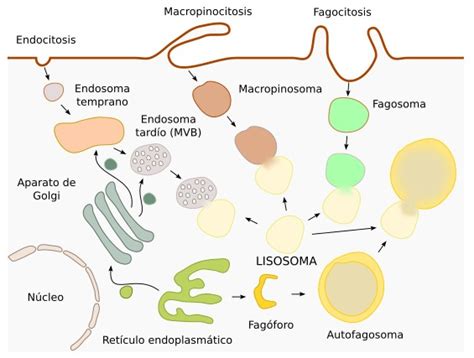
El complejo ligando-receptor internalizado es transportado hacia los endosomas primarios. En este compartimento, el receptor puede separarse progresivamente del ligando y ser clasificado hacia diferentes destinos.
El destino último del receptor internalizado puede ser su degradación proteolítica en lisosomas o su retorno a la membrana plasmática. Esto depende en parte del tipo de ligando unido al receptor.
Los endosomas funcionan como compartimentos de clasificación. Desde ellos, los receptores pueden avanzar hacia compartimentos degradativos o regresar a la superficie celular mediante vesículas de reciclaje.
Degradación lisosomal del receptor
La degradación lisosomal conduce a la eliminación del receptor de la célula. Los receptores que siguen esta ruta son transportados desde los endosomas hacia los lisosomas, donde la degradación proteolítica reduce la cantidad total de receptor disponible.
De esta forma, los receptores ErbB activados por EGF son dirigidos en su mayoría a la degradación lisosomal, mientras que los receptores activados por NDF o TGF-a son reciclados de vuelta a la superficie celular.
La degradación del receptor produce una desensibilización más prolongada que la simple disminución transitoria de su actividad tirosina quinasa. La célula no solo inhibe temporalmente la señal, sino que elimina parte de la maquinaria receptora que podría responder nuevamente al ligando.
Reciclaje y retorno a la membrana plasmática
El reciclaje consiste en el retorno del receptor internalizado a la superficie celular. El receptor puede volver a incorporarse a la membrana plasmática y recuperar su capacidad para interactuar con ligandos extracelulares.
Los receptores activados por NDF o TGF-a son reciclados de vuelta a la superficie celular. Por este mecanismo, la célula conserva receptores y puede restablecer con mayor rapidez su capacidad de respuesta.
El equilibrio entre degradación y reciclaje determina la cantidad de receptor presente en la membrana plasmática y, por tanto, modula la sensibilidad de la célula frente a la señal extracelular.
| Destino del receptor internalizado | Consecuencia celular |
|---|---|
| Degradación proteolítica en lisosomas | Disminución prolongada de la cantidad de receptor |
| Reciclaje a la membrana plasmática | Recuperación de la capacidad de respuesta al ligando |
Internalización y desensibilización de la señal
La internalización del EGFR aminora la señal mitogénica, jugando así un papel relevante en la prevención de la proliferación celular incontrolada.
La señalización celular puede ser intensa y amplificada porque una sola molécula receptora activada puede iniciar cascadas de fosforilación y producir numerosos segundos mensajeros. Por esta razón, la disminución del número de receptores activos constituye un mecanismo importante para limitar la respuesta.
Cuando un ligando interactúa con su receptor de membrana, la señal es transmitida al interior de la célula. Entonces se dispara una cascada de eventos que incluye la síntesis de segundos mensajeros y la fosforilación de enzimas catalizada por proteincinasas.
Los segundos mensajeros son moléculas pequeñas que se generan en gran cantidad y rápidamente en respuesta a la activación de un receptor. Llevan la señal a otras partes de la célula y la amplifican mediante la activación de cinasas y otras enzimas.
Los nucleótidos cíclicos, el ion Ca2+ y ciertos lípidos son ejemplos de segundos mensajeros. La fosforilación y desfosforilación de proteínas son parte de la transducción del mensaje.
Esto significa que la mayoría de los mensajes que se transmiten al interior de las células producen la activación de cinasas que regulan su función mediante la fosforilación de diversos sustratos.
Relación con las cascadas de señalización
La ventaja de una cascada de quinasas es que una pequeña señal externa puede amplificarse muchas veces dentro de la célula. La disfunción de esta cascada puede provocar cáncer debido a la falta de control de la función celular general.
Supongamos que la proteincinasa 1 activa fosforila 100 moléculas de proteincinasa 2, activándolas. Cada una de ellas fosforilará otras 100 moléculas de proteincinasa 3, activándolas.
Cada una de ellas fosforilará a otras 100 moléculas de proteína blanco inactiva responsable de una respuesta celular. En suma, la activación de una molécula de proteincinasa 1 produce la fosforilación de 100 x 100 x 100 moléculas de proteína blanco inactiva.
De esta manera, se amplifica la señal. La internalización del receptor actúa en sentido regulador al limitar la permanencia del receptor activado en la membrana y favorecer su desactivación, reciclaje o degradación.
Vía de las proteínas G y segundos mensajeros
Los receptores acoplados a proteínas G consisten en un polipéptido que atraviesa la membrana plasmática siete veces. Una señal interactúa con el receptor que se activa y cambia de forma.
La proteína G inactiva se une al receptor y se activa. Luego se desplaza hacia otra proteína de membrana que se encuentra en estado inactivo. Cuando la proteína G se une a esta proteína, altera su actividad.
Una vez que la proteína G se une al receptor, el cambio de forma resultante activa la proteína G, que libera GDP y recoge GTP. Las subunidades de la proteína G se dividieron en la subunidad α y la subunidad β.
Posteriormente, el GTP en la subunidad α activa de la proteína G se hidroliza al PIB y se desactiva la subunidad β. Las subunidades se reasocian para formar la proteína G inactiva, y el ciclo comienza de nuevo.
Fosfolípidos y calcio
La hidrólisis del fosfatidilinositol difosfato libera por un lado el inositol trifosfato (IP3) y por el otro diacilglicerol (DAG). La fosfolipasa C es la enzima que cataliza esta reacción.
El IP3 liberado al citoplasma interactúa con receptores localizados en los depósitos de Ca2+ del retículo endoplasmático y estimula la liberación de este ion al citoplasma.
DAG activa proteínas serína treonína pertenecientes a la familia de las proteínas quinasas C. Mientras que IP3 actúa mediante canales iónicos del reservorio de calcio como es el retículo endoplasmático lo que libera el Ca2+.
El Ca2+ es regulado por la calmodulina, armando un complejo entre los dos. La calmodulina/Ca2+ son importantes porque se necesitan para que se activen quinanas CaM.
Vía de las quinasas MAP
La estimulación de los receptares tirosina quinasas generan auto fosforilación generando así, sitios de unión a proteínas SH2. Esta proteína con este dominio SH2 se llama GRb2 que también tiene un factor intercambiador de nucleótidos llamada SOS.
SOS se asocia a la membrana plasmática e interacciona con Ras, pequeña proteína de unión de GTP. Ras interactúa con la proteína serína/treonína quinasa Raf, que a su vez fosforila a MEK.
MEK fosforila a ERK, factor de transcripción nuclear, que se transloca al núcleo y fosforila a Elk-1. Elk-1 es otro factor de transcripción nuclear, en el que desempeña un importante función en la transcripción de genes.
La internalización del EGFR puede disminuir la activación sostenida de estas rutas, ya que reduce la cantidad de receptor disponible en la superficie celular.
Factores que determinan el destino del receptor
El destino del receptor internalizado depende en parte del tipo de ligando unido al receptor. También intervienen el estado de activación del receptor, sus residuos fosforilables, sus dominios citosólicos y las proteínas que se asocian con él.
La unión de la proteína c-Cbl a la región carboxilo terminal del receptor depende de la actividad tirosina quinasa de éste. Además, la ubiquitinación del receptor interviene durante su internalización.
Se ha demostrado que la internalización y degradación del EGFR se ve afectada cuando se producen mutaciones en las tirosinas transfosforilables, lo cual demuestra la importancia de estos residuos en el procesamiento del receptor.
También se ha descrito un dominio específico en la región citosólica del receptor implicado en su internalización, y la importancia de la presencia de cargas negativas cercanas a la Tyr992 del receptor en este proceso.
- Tipo de ligando: puede favorecer la degradación lisosomal o el reciclaje del receptor.
- Actividad tirosina quinasa: permite la autofosforilación y el reclutamiento de proteínas reguladoras.
- Ubiquitinación: acompaña el procesamiento del receptor internalizado.
- Residuos de tirosina: son importantes para la internalización y la degradación del EGFR.
- Dominio citosólico: contiene elementos implicados en el ingreso del receptor a la vía endocítica.
Importancia fisiológica y patológica
Los receptores tirosina quinasas están involucrados en una serie de procesos frecuentemente asociados con la función celular general: ciclo celular, crecimiento y proliferación celular, migración celular y metabolismo celular.
Estos receptores participan en cascadas de señalización, cuyas respuestas biológicas se relacionan con la regulación de la proliferación, la diferenciación, la producción de la matriz extracelular, la reparación de tejidos y la regulación inmunitaria.
La transducción de las señales externas produce una respuesta por parte de la célula blanco. Esta respuesta es una alteración como resultado de la activación o inhibición de alguna vía metabólica, y de modificaciones en la forma o el movimiento de las células.
El papel de estos procesos en el control de la diferenciación, de la proliferación y del crecimiento celular es esencial para el desarrollo y el funcionamiento normales del organismo.
La internalización del EGFR aminora la señal mitogénica, jugando así un papel relevante en la prevención de la proliferación celular incontrolada. De hecho, en las células en las que existen mutaciones en los genes que codifican las proteínas implicadas en la internalización de los receptores ErbB se observa un aumento de la proliferación celular y su transformación en fenotipos malignos.
La internalización defectuosa puede mantener una cantidad excesiva de receptores en la superficie celular o prolongar la señalización intracelular. Como consecuencia, las vías relacionadas con proliferación, supervivencia, migración y crecimiento pueden permanecer activas durante más tiempo.
Los caminos de transducción pueden ser lineales, pero también pueden existir puntos potenciales de regulación y de intersección entre distintos caminos. La respuesta celular está conformada por un circuito complejo de activación que involucra más de un camino de señalización.
Una molécula señal puede ser reconocida por diferentes receptores asociados a distintos mecanismos de transducción. También puede ocurrir que un mismo receptor active diferentes vías.
Secuencia general del proceso
- El ligando se une al dominio extracelular del receptor.
- El receptor cambia su conformación y puede dimerizarse.
- Se activa la región catalítica o una enzima asociada.
- El receptor se autofosforila y recluta moléculas señalizadoras citosólicas.
- Se inicia una cascada de fosforilación y se generan segundos mensajeros.
- El complejo ligando-receptor se concentra en regiones de la membrana plasmática.
- Las proteínas adaptadoras AP-1, AP-2 y Eps15 participan en la formación de vesículas recubiertas de clatrina.
- El complejo es internalizado mediante endocitosis.
- El receptor llega a los endosomas primarios.
- El receptor es clasificado para degradación lisosomal o reciclaje hacia la membrana plasmática.
- La degradación disminuye de forma prolongada la cantidad de receptor, mientras que el reciclaje restablece su disponibilidad en la superficie celular.
La internalización del complejo ligando-receptor no constituye únicamente un mecanismo de transporte hacia el interior de la célula. Es un proceso regulador que integra la activación del receptor, su fosforilación, la ubiquitinación, la clasificación endosomal y el equilibrio entre degradación y reciclaje.
tags: #internalizacion #del #complejo #ligando #receptor