El canal de sodio dependiente de voltaje es una proteína transmembrana que detecta cambios en el potencial eléctrico de la membrana y permite la entrada rápida y selectiva de iones Na+. En las neuronas, esta corriente de sodio inicia la fase de ascenso del potencial de acción y contribuye a su propagación a lo largo del axón.
Su funcionamiento depende de transiciones conformacionales entre tres estados principales: cerrado o de reposo, abierto y activado, e inactivado. La despolarización desplaza el sensor de voltaje, abre la compuerta de activación y permite la entrada de Na+, mientras que la compuerta de inactivación se cierra poco después para detener la corriente y establecer el período refractario.
Qué es un canal iónico regulado por voltaje
Los canales iónicos regulados por voltaje son una clase de proteínas transmembrana que forman canales o conductos iónicos y modulan su permeabilidad al verse expuestos a un cambio en el voltaje de la membrana. Estos desempeñan un papel fundamental en la función de la membrana celular neuronal al facilitar la generación y propagación de señales eléctricas, gracias a su dinámica conformacional y especificidad iónica.
Entendemos por canales iónicos complejos proteicos llenos de poros acuosos, los cuales dejan pasar a los iones, haciendo que fluyan de un lado a otro de la membrana celular. Estos canales están presentes en todas las células, de las cuales son un componente esencial.
Cada célula está rodeada de una membrana que la separa del ambiente exterior. Su estructura de bicapa lipídica no es fácilmente permeable a moléculas polares como los aminoácidos o los iones. Por eso, es necesario transportar estas sustancias hacia dentro y hacia afuera de la célula mediante proteínas de membrana como bombas, transportadores y canales iónicos.
La estructura de los canales iónicos se da en forma de proteínas transmembranales y actúan como un sistema de compuertas para regular el paso de iones (potasio, sodio, calcio, cloro, etc.) a través de poros. Los iones cruzan la membrana celular a través de canales hechos con proteínas intrínsecas formadas por cuatro a siete subunidades, cuya estructura cuaternaria deja en su centro un poro hidrofílico para los iones.
Unidades funcionales del canal
Los canales iónicos regulados por voltaje están compuestos por subunidades con dominios transmembrana, dispuestas y configuradas de tal manera que forman un poro central. Este poro actúa como una vía para la entrada o salida de iones seleccionados a través de la membrana.
El poro se abre para el ion seleccionado porque los aminoácidos en la estructura del canal son sensibles a la carga. Una de las particularidades de estos canales es su selectividad; es decir, ellos determinan que pasen algunos iones inorgánicos y no otros, en función del diámetro y la distribución de sus aminoácidos.
Sensor de voltaje
El sensor de voltaje detecta los cambios en el potencial de membrana. Está compuesto por residuos de aminoácidos cargados y cambia su conformación, lo que lleva a la apertura o cierre del canal como consecuencia a las alteraciones del voltaje.
El segmento S4 actúa como el dominio sensor de voltaje. En él se concentran residuos cargados positivamente, principalmente arginina o lisina, cuyo desplazamiento dentro del campo eléctrico transmembrana convierte el cambio de voltaje en un movimiento molecular.
Poro y filtro de selectividad
El poro actúa como la vía conductora donde pasan los iones. La selectividad iónica del canal se determina por la composición de aminoácidos del poro, junto con la carga y el tamaño del ion.
Los segmentos S5-S6 y el lazo poro, también conocido como lazo-P, forman la región que delimita el poro conductor de Na+. La porción citoplásmica del poro está formada por la combinación de los segmentos S5 y S6 de los cuatro dominios.
Compuertas
Las compuertas controlan la dinámica de apertura y cierre del canal basadas en el potencial de membrana. La compuerta de activación generalmente se abre en respuesta a la despolarización.
En algunos canales, también está presente una compuerta de inactivación. En los canales de sodio, esta segunda compuerta permite detener rápidamente la entrada de Na+ después de la apertura inicial.
Estructura molecular del canal de sodio
La estructura central de los canales de Na+ regulados por voltaje está formada por una subunidad alfa (α), que contiene cuatro dominios homólogos (I-IV), cada uno con seis segmentos transmembrana (S1-S6).
Los canales de sodio voltaje-dependientes están compuestos por una subunidad α y una o más subunidades β. La subunidad α, de las diferentes isoformas de los VGSC, es codificada por genes que van desde SCN1A a SCN11A.
Esta subunidad está compuesta por aproximadamente 2000 aminoácidos y representada estructuralmente por la unión de 4 dominios (DI hasta DIV). Cada dominio tiene 6 segmentos transmembranales (S1 hasta S6).
Los extremos C-y N-terminal y los lazos de unión de los dominios entre sí son intracitoplasmáticos. Los segmentos S5-S6 y el lazo P de cada dominio forman el poro del canal que penetra en el interior de la membrana y contiene el filtro de selectividad del mismo.
| Región | Función principal |
|---|---|
| S1-S4 | Detección y transducción de los cambios de voltaje |
| S4 | Sensor de voltaje |
| S5-S6 y lazo-P | Formación del poro y filtro de selectividad |
| Lazo entre los dominios III y IV | Compuerta de inactivación |
| Subunidades β | Modulación de la cinética, localización y sensibilidad al voltaje |
El segmento S4 como sensor de voltaje
En el segmento S4 uno de cada tres residuos está cargado, principalmente arginina o lisina, razón por la que el segmento S4 funciona como un sensor de voltaje.
El dominio sensor de voltaje S4 contiene residuos de arginina o lisina cargados positivamente en patrones repetidos (motivos), orientados hacia el citosol en el estado de reposo. A medida que la membrana se despolariza, los aminoácidos cargados positivamente se desplazan hacia el exterior.
Durante la despolarización alrededor de 12 de las 22 cargas que forman parte del sensor de voltaje se desplazan siguiendo un movimiento en espiral a través del campo eléctrico transmembrana, iniciando así un cambio conformacional que facilita la apertura del canal de Na+.
Modelos de cómo funciona el sensor de voltaje predicen que el segmento S4 se desliza 6-8 Å hacia afuera a través de un estrecho surco formado por los segmentos S1, S2 y S3, gira ∼ 30° y se inclina hacia los lados en un punto de giro formado por una región hidrófoba altamente conservada localizada cerca de la mitad del sensor de voltaje.
Los cambios conformacionales de la mitad intracelular de S4 durante la activación se acoplan al movimiento lateral del lazo S4-S5, lo que podría inducir el movimiento de los segmentos S5 y S6 y abrir la puerta intracelular del poro.
El filtro de selectividad para Na+
En los lazos P del canal de Na+ existen cuatro residuos cargados, el denominado “locus DEKA”, que forma un anillo que, junto con otro anillo externo, conforman una estructura que determina la conductancia y la selectividad iónica.
La sustitución de los aminoácidos del locus DEKA por 4 residuos de glutámico presentes en posiciones análogas en el canal de Ca2+ convierte a los canales de Na+ en selectivos para el Ca2+.
Subunidades auxiliares
Aunque las subunidades alfa son funcionales por sí mismas, pueden unirse a proteínas auxiliares, como las subunidades beta (β), que alteran la sensibilidad al voltaje, la cinética del canal y la localización celular de los canales.
Existen cuatro subunidades β diferentes codificadas por los genes SCN1B, SCN2B, SCN3B y SCN4B, respectivamente. Se trata de glicoproteínas transmembrana de tipo 1 con un único dominio transmembrana, un extremo N-extracelular y un extremo C-citoplasmático.
Las subunidades β aumentan el tráfico del canal hacia la membrana, modulan sus propiedades de activación e inactivación y participan en la interacción de los canales de Na+ con moléculas de adhesión celular, matriz extracelular y citoesqueleto intracelular.
La subunidad β permite la fijación de las isoformas Nav a la célula y su intercomunicación con otras proteínas de anclaje, influyendo en su excitabilidad neuronal y en la expresión, cinética y farmacología de los VGSC.
Las mutaciones en los genes que codifican las subunidades β están presentes en varios síndromes arritmogénicos primarios, lo que confirma su importante papel en la regulación de los canales de Na+ cardíacos.
Proteínas que interactúan con el canal
Muchas proteínas interactúan de forma transitoria con los canales de Na+ en el contexto de la regulación de los canales, incluidas varias proteínas quinasas y proteínas G, mientras que otras interactúan de forma más permanente, incluidas las moléculas de adhesión celular y las proteínas del citoesqueleto.
La calmodulina se une a un sitio conservado en el dominio C-terminal proximal del canal de Na+ y participa en la inactivación del mismo.
Los factores homólogos del factor de crecimiento de fibroblastos también pueden formar un complejo estable con el extremo C-terminal de los canales de Na+. Las alteraciones de esta interacción pueden modificar la inactivación, aumentar la corriente de sodio y prolongar la duración del potencial de acción.
Estados conformacionales del canal de sodio
Los canales iónicos regulados por voltaje pueden encontrarse en tres configuraciones o estados: Estado abierto/activado (puerta de activación abierta; puerta de inactivación abierta) Estado desactivado/en reposo (puerta de activación cerrada; puerta de inactivación abierta) Estado desactivado permanentemente/inactivo (puerta de activación abierta; puerta de inactivación cerrada).
Durante el potencial de acción, los canales de Na+ adoptan tres estados conformacionales: uno conductor, abierto, y dos no conductores, cerrado e inactivo. La transición entre estos estados es un proceso voltaje- y tiempo-dependiente que se conoce como gating del canal.
| Estado | Compuerta de activación | Compuerta de inactivación | Flujo de Na+ |
|---|---|---|---|
| Cerrado o de reposo | Cerrada | Abierta | No hay flujo significativo |
| Abierto o activado | Abierta | Abierta | Entrada rápida de Na+ |
| Inactivado | Abierta | Cerrada | El flujo está bloqueado |
Estado cerrado o de reposo
Por lo general, la porción interna de la membrana celular está cargada negativamente cuando se encuentra en reposo. Esto se debe a la actividad de la Na+/K+ ATPasa, que transporta tres iones Na+ fuera de la célula y dos iones K+ hacia dentro de la célula.
Esta diferencia de carga se mide en -70 mV, un valor conocido como potencial de membrana en reposo. En este estado, la compuerta de activación permanece cerrada, mientras que la compuerta de inactivación está abierta.
Durante la diástole el canal se encuentra en un estado cerrado no conductor o de reposo y la probabilidad de que se abra es extremadamente baja.
Estado abierto o activado
Cualquier cambio en el potencial a través de la membrana que haga que el interior de la membrana sea menos negativo en comparación con el exterior se llama despolarización.
La suma temporal y espacial de los potenciales graduados postsinápticos en la superficie receptiva puede llevar el voltaje desde el potencial de membrana en reposo (-70 mV) hasta un potencial umbral (-55 mV).
Cuando la membrana celular se despolariza hasta alcanzar el potencial umbral, se inicia un potencial de acción en el cono axónico, la llamada “zona gatillo” de la neurona.
El movimiento del sensor S4 desencadena cambios conformacionales y la compuerta de activación se abre en respuesta al potencial umbral, permitiendo que los iones Na+ entren rápidamente en la célula.
Estado inactivado
Sincronizado con el pico de despolarización a +30 mV, la compuerta de inactivación se cierra, impidiendo la entrada extra de iones Na+ en la célula.
Para lograr el cierre de la compuerta de inactivación se necesita el estímulo que en este caso también sería la despolarización inicial; sin embargo, el cierre se retrasa, regulando el tiempo y la duración del potencial de acción.
El estado inactivo predomina a niveles despolarizados del potencial de membrana. Los canales que se encuentran en estado inactivo no se pueden volver a abrir hasta que se mueven desde el estado inactivo al estado cerrado.
A este proceso se le denomina reactivación del canal, y es un proceso necesario para que el canal pueda volver a abrirse.
Mecanismo de activación y apertura
Los canales iónicos regulados por voltaje se abren en respuesta a cambios en el potencial eléctrico a través de la membrana plasmática. El flujo de iones se lleva a cabo en dos procesos: por activación, un proceso dependiente de voltaje, y por inactivación, un proceso que regula el cierre del canal.
Cada isoforma del VGSC se activa a un umbral de potencial específico, el cual induce el desplazamiento de S4 para abrir la compuerta de activación, permitiendo el flujo de Na+, lo cual inicia y mantiene la despolarización.
Durante la despolarización del potencial de membrana se produce un rápido aumento de la permeabilidad al Na+ debido a la apertura de los canales desde el estado cerrado al abierto, permitiendo la entrada de Na+ durante aproximadamente 1-2 ms.
El transporte de iones es pasivo y solo depende del potencial electroquímico del ion, por lo que no requiere energía en forma de molécula de ATP. La entrada de Na+ vuelve todavía menos negativo el interior de la célula y favorece la apertura de canales vecinos.
Mecanismo de inactivación
La región que une los dominios III y IV forma la compuerta de inactivación del canal. El lazo citoplásmico entre los dominios DIII y DIV contiene una secuencia de isoleucina-fenilalanina-metionina (IFM), que actúa como una partícula de inactivación que ocluye el poro del canal.
La inactivación se inicia simultáneamente con la activación, pero debido a que el proceso de inactivación es más lento los canales permanecen abiertos de forma transitoria y generan la corriente de Na+ durante la fase inicial del potencial de acción.
Se acepta que la secuencia IFM y las regiones adyacentes actúan como una partícula de inactivación que interactúa con aminoácidos localizados en la porción intracitoplasmática del canal, de esta forma se ocluye la porción intracitoplasmática del poro y se produce la rápida inactivación del canal tras su apertura.
La inactivación de los VGSC puede darse de forma rápida, debido a la veloz unión de los dominios DIII-DIV al segmento S4, o de forma lenta, debido a procesos relacionados con los aminoácidos que recubren el segmento S6.
En ocasiones, los canales de Na+ pueden transitar directamente desde el estado abierto al estado cerrado; a este proceso se le denomina desactivación del canal.
Las mutaciones en la compuerta de inactivación, en las regiones que sirven de receptor para dicha compuerta y en el segmento S4 del dominio IV facilitan la reapertura del canal y producen un aumento de la corriente persistente de Na+.
Canal de sodio y potencial de acción neuronal
Como un evento digital, el potencial de acción es un fenómeno de “todo o nada”; cualquier despolarización que no alcance el umbral no resultará en un potencial de acción.
Estímulos más fuertes iniciarán múltiples potenciales de acción con mayor frecuencia, pero los potenciales de acción individuales alcanzarán el mismo voltaje máximo (+30 mV).
Los canales de Na+ regulados por voltaje están altamente concentrados en el cono axónico y son responsables de la fase de ascenso rápido de los potenciales de acción.
La principal función de los canales iónicos regulados por voltaje es la generación de potenciales de acción y su propagación. En las neuronas, los canales de sodio son los responsables de la fase ascendente del potencial de acción, es decir, de la despolarización.
| Momento del potencial de acción | Estado predominante del canal | Consecuencia |
|---|---|---|
| Potencial de reposo (-70 mV) | Activación cerrada e inactivación abierta | El canal está disponible, pero no conduce Na+ |
| Potencial umbral (-55 mV) | Apertura de la compuerta de activación | Comienza la entrada rápida de Na+ |
| Pico de despolarización (+30 mV) | Activación abierta e inactivación cerrada | Se detiene la entrada de Na+ |
| Repolarización | Recuperación progresiva | El canal pasa de inactivado a cerrado |
Período refractario y propagación unidireccional
Una vez que se ha iniciado un potencial de acción, no se puede comenzar un segundo. Este suceso o fenómeno se conoce como el período refractario y tiene dos fases.
Período refractario absoluto
El período refractario absoluto es aquel durante el cual la célula no puede iniciar un potencial de acción, independientemente de la fuerza del estímulo, ya que los canales de Na+ regulados por voltaje están ya activados o inactivados.
Período refractario relativo
El período refractario relativo es aquel durante el cual un estímulo más fuerte de lo usual puede iniciar un potencial de acción, ya que los canales de Na+ regulados por voltaje han vuelto a su estado de reposo, con la compuerta de inactivación abierta, pero la membrana está hiperpolarizada.
El período refractario es clave para la unidireccionalidad de la propagación del potencial de acción a lo largo del axón hacia las terminaciones axónicas, eliminando la posibilidad de que un potencial de acción se desplace de regreso hacia el soma.
Conducción continua y conducción saltatoria
La propagación de los potenciales de acción a lo largo del axón difiere según el estado actual de mielinización de la neurona.
En las neuronas no mielinizadas, la conducción es continua a lo largo de toda la longitud del axón, lo que causa una apertura en forma de onda constante de los canales de Na+ regulados por voltaje en regiones adyacentes.
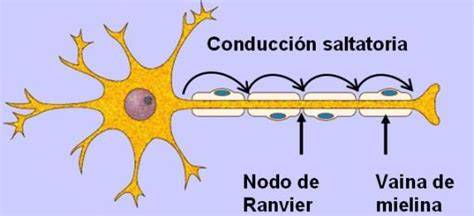
En las neuronas mielinizadas, la conducción se conoce como conducción saltatoria, donde los impulsos se mueven por saltos.
Los canales de Na+ regulados por voltaje solo están presentes en los nódulos de Ranvier, donde la membrana del axón está expuesta, y, por lo tanto, los potenciales de acción “saltan” de un nodo a otro, pasando por alto las áreas mielinizadas.
Este patrón de propagación permite una transmisión más rápida y eficiente energéticamente.
Funciones del canal de sodio en distintos tejidos
Los canales de sodio regulados por voltaje son complejos proteicos encargados de la conducción de estímulos en diferentes partes del organismo y comprenden nueve isoformas que van desde Nav1.1 hasta Nav1.9.
Estas isoformas se clasifican en sensibles a la tetrodotoxina, como Nav1.1, Nav1.2, Nav1.3, Nav1.4, Nav1.6 y Nav1.7, y resistentes a la tetrodotoxina, como Nav1.5, Nav1.8 y Nav1.9.
La fase de rápida despolarización de los potenciales de acción de las células musculares auriculares y ventriculares y del sistema His-Purkinje es debida a la entrada de Na+ a través de canales activados por cambios de voltaje que generan la corriente INa.
Esta corriente determina la excitabilidad y la velocidad de conducción de los potenciales de acción a través de las aurículas y los ventrículos.
Además, los canales de Na+ dependientes de voltaje son el receptor de los anestésicos locales, algunos antiepilépticos y los fármacos antiarrítmicos del grupo I.
Isoformas Nav y propiedades funcionales
Nav1.7
El flujo lento de los iones Na+ del canal Nav1.7 y su lenta inactivación generan una corriente en rampa, la cual aumenta el potencial generado por estímulos sensoriales e inicia nuevos potenciales de acción.
Nav1.8
La gran cantidad de flujo continuo de Na+ del canal Nav1.8 y la rápida recuperación de su estado activado le permiten aumentar la duración de los potenciales de acción.
Nav1.9
Los canales Nav1.9 se activan e inactivan cerca del potencial de membrana en reposo.
Estos canales generan flujos constantes de Na+ debido al bloqueo lento y parcial de sus compuertas, lo que permite mantener el potencial en meseta a voltajes subumbrales.
Este flujo activa los nociceptores y produce potenciales de acción a un umbral reducido, que sobreexcita las neuronas y genera dolor neuropático.
Canales de sodio y dolor neuropático
Los canales de sodio voltaje dependiente son complejos proteicos glicosilados que atraviesan la membrana celular; estos canales se despolarizan rápidamente aumentando la conductancia de Na+ en respuesta a estímulos nociceptivos, temperatura, tacto y propiocepción.
La familia de canales de sodio dependientes de voltaje está conformada por nueve isoformas; de estas, los canales Nav1.6, Nav1.7, Nav1.8 y Nav1.9 han sido asociados a la nocicepción y las vías del dolor.
El dolor neuropático se produce cuando existe una lesión en el sistema nervioso somatosensorial. La alteración en la expresión de los canales de sodio, potasio y calcio podría aumentar la actividad neuronal de manera ectópica y espontánea, para así generar excitabilidad en el nervio y reducir el umbral de los nociceptores.
Una lesión nerviosa puede alterar la expresión de las moléculas de los VGSC, variando así sus propiedades electrofisiológicas. Esto implica la modulación de las corrientes de sodio que contribuyen a la hiperexcitabilidad neuronal asociada a la generación de estados de dolor neuropático.
Canales de sodio y neuralgia del trigémino
La neuralgia del trigémino se caracteriza por un dolor facial generalmente unilateral de episodios recurrentes a lo largo de las ramas del nervio trigémino.
La manifestación del dolor se describe como lancinante, agudo, repentino, superficial, similar a un choque eléctrico, de inicio y término brusco. Además, se acompaña de hiperalgesia mecánica, química y térmica.
El origen más común es la compresión nerviosa que sufre la raíz del ganglio trigeminal cercano a su punto de entrada en el ángulo pontocerebeloso, usualmente dicha compresión se debe a una prolongación arterial o venosa anormal.
El hallazgo de ausencia de la compresión neurovascular en pacientes con neuralgia del trigémino o la presencia de compresión neurovascular en personas asintomáticas generó que se postulen teorías alternativas como el funcionamiento anormal de los canales iónicos.
Los cambios electrofisiológicos son inciertos, pero están acompañados con variaciones en la expresión de canales iónicos, receptores y neuropéptidos que podrían aumentar la excitación de las neuronas y generar la patología.
Se ha encontrado que la expresión de algunos subtipos de VGSC aumenta y otros disminuye tras la lesión del nervio trigémino. Esta variación en la expresión estaría implicada en el incremento de la generación y transmisión de potenciales de acción desencadenados por estímulos que normalmente serían subumbrales.
Hiperexcitabilidad tras la lesión nerviosa
El dolor neuropático causado tras una lesión nerviosa puede estimular la producción de la proteína quinasa y esta proteína, a su vez, estimula el incremento de la expresión del canal Nav1.7.
En la fase aguda de la patología hay un incremento del canal Nav1.8 en neuronas no lesionadas, mientras que en la fase crónica se ha encontrado un aumento de la expresión del canal Nav1.8 en las neuronas lesionadas.
La alodinia e hiperalgesia de la neuralgia del trigémino podrían ser causadas por la generación de potenciales de acción producidos por el incremento del canal Nav1.3 en el nervio y ganglio del trigémino después de la lesión nerviosa.
La sustitución de la metionina 136 por valina en el segmento transmembrana 1 del dominio I genera un aumento significativo en las corrientes pico transitorias y resurgentes del canal Nav1.6 y reduce el umbral para el potencial de acción en las neuronas del ganglio del trigémino.
Canalopatías relacionadas con canales de sodio
Los trastornos genéticos que involucran mutaciones en genes que codifican canales regulados por voltaje se conocen como canalopatías.
Estas mutaciones pueden afectar la apertura y cierre del canal, su conductancia o la selectividad iónica. La desregulación de los canales regulados por voltaje comúnmente conduce a trastornos del sistema nervioso central o del sistema musculoesquelético.
Dentro de las alteraciones genéticas se encuentran las mutaciones que se presentan en la región codificante del gen para un canal iónico. Es habitual que estas mutaciones produzcan cadenas polipeptídicas que no son procesadas correctamente y no se incorporan a la membrana plasmática.
Otra posibilidad frecuente es que, aun siendo canales funcionales, terminen por mostrar una cinética alterada. Sea como fuere el caso, suelen llevar a la ganancia o pérdida de la función del canal.
También se pueden presentar mutaciones en la región promotora del gen que codifica para un canal iónico. Esto puede causar subexpresión o sobreexpresión de la proteína, produciéndose cambios en el número de canales.
A nivel musculoesquelético, las mutaciones en los canales de Na+, K+, Ca2+ y Cl- activados por voltaje y en el canal de acetilcolina llevan a desórdenes como las parálisis hiper e hipocaliémica, miotonías, hipertermia maligna y miastenia.
A nivel neuronal, se ha propuesto que las alteraciones en los canales de Na+ activados por voltaje, los canales de K+ y Ca2+ activados por voltaje, el canal activado por acetilcolina o el activado por glicina podrían explicar trastornos como la epilepsia, la ataxia episódica, la migraña hemipléjica familiar, el síndrome de Lambert-Eaton, la enfermedad de Alzheimer, la enfermedad de Parkinson y la esquizofrenia.
Ataxia episódica tipo 1
La ataxia episódica tipo 1 es un ejemplo de una canalopatía que ocurre raramente pero que se hereda de manera autosómica dominante.
Está asociada con los canales de K+ regulados por voltaje que se encuentran principalmente en las células en cesto del cerebelo y en otras interneuronas que forman sinapsis inhibitorias con las células de Purkinje.
Esta canalopatía está vinculada a mutaciones en el gen KCNA1, que codifica una clase específica de la subunidad alfa, la clase Kv1.1.
Los pacientes con ataxia episódica tipo 1 experimentan episodios de ataxia, debilidad muscular intermitente, temblor, disartria, vértigo, convulsiones y mioquimia interictal.
Uso farmacológico de los canales de sodio
En la práctica clínica, se utilizan medicamentos que actúan directamente sobre los canales regulados por voltaje para controlar la actividad convulsiva.
La fenitoína, un medicamento anticonvulsivo, funciona bloqueando los canales de sodio regulados por voltaje y, por ende, interfiere en la retroalimentación positiva que mantiene la descarga repetitiva de alta frecuencia.
La subunidad alfa contiene también el receptor para anestésicos locales, antiarrítmicos y anticonvulsivos, formado por residuos localizados en el segmento S6 de los dominios DI, DII y DIV.
Relación con otros canales regulados por voltaje
Canales de K+
Los canales de K+ regulados por voltaje están formados por cuatro subunidades alfa, cada una contribuyendo con un dominio transmembrana que contiene seis segmentos transmembrana (S1-S6) y subunidades auxiliares.
Al igual que los canales de Na+ regulados por voltaje, el segmento S4 actúa como el dominio sensor de voltaje, y los segmentos S5-S6, junto con su bucle conector, forman la compuerta y el poro conductor de K+.
La despolarización activa los canales de K+ y facilita la salida de K+ de la célula nerviosa, lo que conduce a una repolarización del potencial de membrana.
Canales de Ca2+
Los canales de Ca2+ regulados por voltaje son heteromultímeros, formados por una subunidad α1 y subunidades auxiliares α2-δ, β y γ, que modulan la dependencia del voltaje y la cinética de apertura del canal.
Cuando un potencial de acción alcanza la terminal del axón, los canales de Ca2+ regulados por voltaje se abren, lo que provoca la entrada de Ca2+.
Los iones de Ca2+ se unen a proteínas en la superficie de las vesículas sinápticas, facilitando su fusión con la membrana presináptica. Esto lleva a la liberación de neurotransmisores o neuropéptidos a través de la exocitosis.
Canales de Cl-
Existen varios subtipos de canales de Cl- regulados por voltaje. En las neuronas, la apertura de estos canales es dependiente de su sensibilidad al voltaje, así como la dirección del movimiento de Cl-, varían según el contexto fisiológico y su subtipo.
Los canales de Cl- regulados por voltaje suelen activarse durante la hiperpolarización, contribuyendo a los potenciales postsinápticos inhibitorios. Esto impide que la neurona alcance el potencial umbral antes de que se dispare un potencial de acción.
Comparación funcional de los principales canales
| Canal | Dirección predominante del ion | Función principal |
|---|---|---|
| Na+ regulado por voltaje | Entrada de Na+ | Fase de ascenso rápido y propagación del potencial de acción |
| K+ regulado por voltaje | Salida de K+ | Repolarización e hiperpolarización |
| Ca2+ regulado por voltaje | Entrada de Ca2+ | Fusión de vesículas sinápticas y liberación de neurotransmisores |
| Cl- regulado por voltaje | Variable según el subtipo y el contexto | Regulación de la excitabilidad e hiperpolarización |
Cómo se estudian los canales iónicos
Durante experimentos usando axones gigantes de calamar, Alan L. Hodgkin y Andrew F. Huxley reemplazaron los iones sodio del exterior y con ello pudieron demostrar que el potencial de acción se debía a la entrada de estos iones.
El siguiente paso que permitió descifrar los secretos del potencial de acción fue la instrumentación, cuando Kenneth S. Cole inventó la técnica conocida como control de voltaje.
Como la corriente que se necesitaba inyectar para mantener el potencial de la membrana en un valor constante era igual, pero de signo opuesto a la que cruza la membrana, esto hizo posible medir las corrientes iónicas que producen los cambios de voltaje que ocurren durante el potencial de acción.
Hasta los años setenta, los biofísicos solo podían estudiar los canales iónicos registrando las corrientes macroscópicas producidas por la apertura y cierre de decenas o centenares de canales.
En 1976 Erwin Neher y Bert Sakmann desarrollaron el patch-clamp. Esto permitió distinguir los diferentes canales y encontrar que pueden agruparse de acuerdo con su dependencia para la apertura, ya fuera del voltaje transmembrana, de un ligando extracelular o de un ligando intracelular.
Una de las toxinas más útiles para caracterizar las corrientes iónicas ha sido la tetrodotoxina (TTX), un alcaloide neurotóxico aislado del pez globo. Se encontró que la TTX bloqueaba exclusivamente el canal para el sodio.
Poco después también se encontró que la molécula de tetraetilamonio bloqueaba el canal para el potasio, lo que proporcionó evidencias de la existencia de canales independientes para el sodio y el potasio.
El conocimiento de la secuencia genética y la mutagénesis dirigida permitieron modificar de forma deliberada los aminoácidos del canal y analizar su función, su selectividad y sus mecanismos de activación e inactivación.