Los receptores ligados a cinasas son proteínas transmembrana que convierten la unión de moléculas señalizadoras extracelulares en respuestas bioquímicas dentro de la célula. Su actividad regula procesos como la proliferación, la diferenciación, la supervivencia, el metabolismo, la migración, la forma celular, la reparación tisular y la respuesta inmunitaria.
Después de los receptores acoplados a proteínas G, las tirosina cinasas receptoras y los receptores nucleares de hormonas constituyen las dos familias más numerosas de receptores que median la comunicación entre células. Las tirosina cinasas receptoras son receptores para diversas hormonas polipeptídicas y factores de crecimiento, mientras que los receptores nucleares de hormonas reconocen esteroides y otras hormonas no peptídicas.
Características generales de los receptores ligados a cinasas
Los receptores ligados a enzimas son proteínas transmembrana con un dominio de unión al ligando en la superficie externa y un dominio catalítico o asociado a una enzima en el lado citoplasmático. Cada receptor presenta una elevada especificidad por su ligando, lo que permite una transducción precisa de la señal.
La unión de un ligando al dominio extracelular provoca un cambio conformacional que activa el dominio enzimático o la enzima asociada. Muchos receptores ligados a enzimas, como las tirosina cinasas receptoras, forman dímeros u oligómeros cuando se unen al ligando.
La mayoría de estos receptores requieren una dimerización inducida por el ligando. La dimerización produce un cambio conformacional que permite expresar la actividad enzimática. Las principales actividades citoplasmáticas corresponden a la actividad de tirosina cinasa, tirosina fosfatasa, cinasa de serina o treonina, y guanilato ciclasa.
Los receptores ligados a enzimas conectan la identificación de ligandos externos con la actividad de enzimas intracelulares. La respuesta celular específica surge de una cadena de acontecimientos que comienza con el reconocimiento del ligando y continúa con la activación del receptor y de las vías de señalización intracelular.
| Clase de receptor | Actividad principal | Ejemplos o funciones |
|---|---|---|
| Receptores tirosina cinasa | Fosforilación de residuos de tirosina | EGF, FGF, PDGF, VEGF, NGF, IGF-1 e insulina |
| Receptores asociados a tirosina cinasas | Activación de cinasas citoplasmáticas, especialmente JAK | Receptores de citocinas, interferones y eritropoyetina |
| Receptores serina/treonina cinasa | Fosforilación de residuos de serina o treonina | Receptores de la superfamilia del TGF-β |
| Receptores tirosina fosfatasa | Eliminación de grupos fosfato de residuos de tirosina | Regulación negativa o ajuste de señales intracelulares |
| Receptores unidos a guanilato ciclasa | Conversión de GTP en GMP cíclico | Péptidos natriuréticos y regulación de la diuresis |
Receptores tirosina cinasa
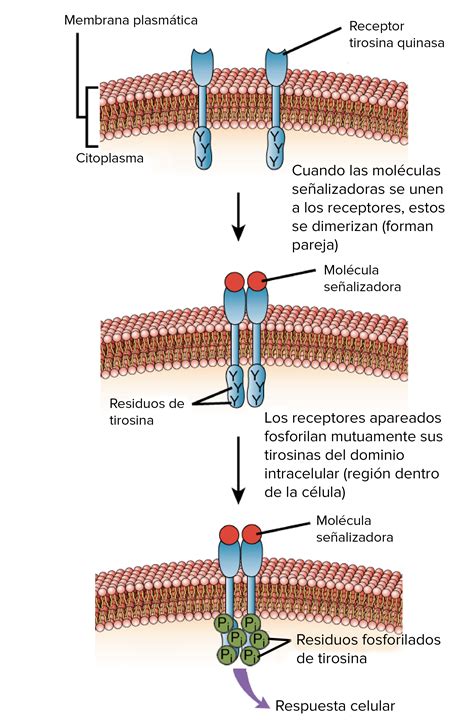
Las tirosina cinasas receptoras, conocidas como RTK, señalizan a través de la membrana plasmática en respuesta a la unión de factores de crecimiento, hormonas como la insulina y otros polipéptidos secretados.
Las proteínas RTK son grandes proteínas integrales de membrana que poseen un único segmento que atraviesa la membrana. La región extracelular reconoce el ligando, el segmento transmembrana ancla el receptor a la membrana y la región citoplasmática contiene el dominio tirosina cinasa.
Las proteínas cinasas representan una de las clases más importantes de proteínas implicadas en la regulación celular. Más de 500 genes humanos codifican proteínas cinasas. La mayoría fosforila los grupos hidroxilo de residuos de serina o treonina, mientras que aproximadamente 90 genes humanos codifican tirosina cinasas que fosforilan los grupos hidroxilo de residuos de tirosina.
Los receptores tirosina cinasa son receptores de una amplia variedad de factores de crecimiento y hormonas. Entre sus ligandos se encuentran el factor de crecimiento epidérmico, el factor de crecimiento derivado de plaquetas, los factores de crecimiento de fibroblastos, el factor de crecimiento de hepatocitos, la insulina, el factor de crecimiento similar a la insulina 1, el factor de crecimiento endotelial vascular, el factor estimulante de colonias de macrófagos y las neurotrofinas, incluido el factor de crecimiento nervioso.
Los receptores tirosina cinasa pueden clasificarse en más de 16 subfamilias estructurales, cada una asociada con una familia complementaria de ligandos proteicos. En todos los casos, la unión de una proteína señalizadora al dominio de unión al ligando situado en el exterior de la célula activa el dominio tirosina cinasa intracelular.
Dimerización y autofosforilación
La unión del ligando suele aproximar dos cadenas receptoras vecinas en la membrana, formando un dímero o un oligómero de mayor orden. La dimerización aproxima los dominios cinasa de ambas moléculas y permite que cada subunidad fosforile residuos de tirosina de su pareja, en un proceso denominado autofosforilación o fosforilación cruzada.
Algunos RTK existen de manera constitutiva como agregados diméricos, mientras que otros forman dímeros en respuesta a la unión del ligando. En el dímero activado por el ligando, cada subunidad fosforila residuos de tirosina en la subunidad asociada.
En ciertos casos, la unión del ligando induce directamente la oligomerización. En otros, la oligomerización ocurre antes de la unión del ligando y el ligando provoca una reorientación de las cadenas receptoras dentro de la membrana. En ambos casos, el reordenamiento de las colas citosólicas inicia la señalización intracelular.
El factor de crecimiento derivado de plaquetas es un dímero que une dos receptores. Incluso algunos ligandos monoméricos, como el factor de crecimiento epidérmico, se unen simultáneamente a dos receptores y los conectan directamente. Los factores de crecimiento de fibroblastos, que también son monómeros, forman primero multímeros al unirse a proteoglucanos de sulfato de heparán presentes en la superficie celular o en la matriz extracelular.
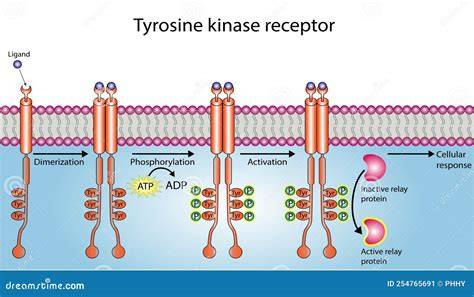
La autofosforilación de la cola citosólica de los RTK contribuye a la activación de dos maneras. En primer lugar, la fosforilación de tirosinas situadas dentro del dominio cinasa aumenta la actividad catalítica de la enzima. En segundo lugar, la fosforilación de tirosinas situadas fuera del dominio cinasa crea sitios de anclaje de alta afinidad para diversas proteínas de señalización intracelular.
Cada proteína de señalización se une a un sitio fosforilado diferente porque contiene un dominio específico de unión a fosfotirosina que reconoce tanto la fosfotirosina como las características que la rodean en la cadena polipeptídica.
Complejos de señalización y dominios de anclaje
La mayor parte de la señalización de los RTK se produce mediante la nucleación de complejos proteicos organizados sobre los residuos de tirosina fosforilados de los receptores activados.
Una vez unido a la cinasa activada, la proteína de señalización puede fosforilarse a su vez en residuos de tirosina y activarse. En otros casos, la unión por sí sola es suficiente para activar la proteína anclada.
La autofosforilación funciona como un interruptor que desencadena el ensamblaje transitorio de un gran complejo de señalización intracelular. Este complejo transmite señales por múltiples rutas hacia distintos destinos dentro de la célula.
Las proteínas que se unen a las fosfotirosinas de los RTK activados suelen contener dominios SH2 o, con menor frecuencia, dominios PTB. Estos pequeños dominios reconocen tirosinas fosforiladas y permiten que las proteínas que los contienen se unan a receptores tirosina cinasa activados y a otras proteínas de señalización fosforiladas de manera transitoria.
Muchas proteínas de señalización contienen además otros módulos proteicos que les permiten interaccionar específicamente con otras proteínas y formar cadenas de señalización.
Algunas proteínas ancladas son enzimas, como la fosfolipasa C-γ, que funciona de manera similar a la fosfolipasa C-β y activa la vía de los fosfolípidos de inositol. A través de esta ruta, los RTK pueden aumentar la concentración citosólica de calcio.
Otra enzima que se ancla a los RTK es la tirosina cinasa citoplasmática Src, que fosforila otras proteínas de señalización en residuos de tirosina. La fosfatidilinositol 3-cinasa genera moléculas lipídicas específicas en la membrana plasmática para atraer allí otras proteínas de señalización.
No todas las proteínas que se unen a los RTK activados mediante dominios SH2 transmiten la señal. Algunas disminuyen la señalización y proporcionan retroalimentación negativa. La proteína c-Cbl puede anclarse a ciertos receptores y catalizar su conjugación con ubiquitina, lo que favorece la internalización y degradación de los receptores.
Vía Ras-Raf-MEK-ERK
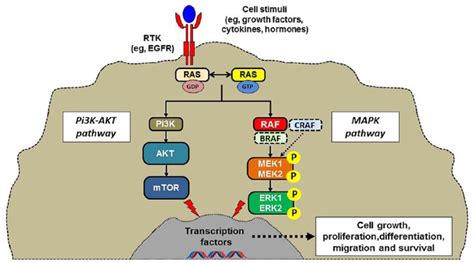
Una de las vías más importantes iniciadas por la autofosforilación de los RTK emplea la proteína G monomérica Ras.
Ras pertenece a la gran superfamilia de GTPasas monoméricas. Al igual que otras GTPasas monoméricas, posee un grupo lipídico unido covalentemente que ayuda a anclarla a la cara citoplasmática de la membrana plasmática, donde ejerce su función.
Ras funciona como un interruptor molecular que alterna entre dos estados conformacionales: está activa cuando tiene GTP unido e inactiva cuando tiene GDP unido.
Las proteínas de intercambio de nucleótidos de guanina, conocidas como GEF, promueven la disociación del GDP y la incorporación posterior de GTP desde el citosol, activando Ras. Las proteínas activadoras de GTPasa, conocidas como GAP, aumentan la velocidad de hidrólisis del GTP unido a Ras y producen su inactivación.
Una GEF esencial que controla la actividad de Ras es SOS. SOS se activa al unirse a la proteína adaptadora Grb2, que se asocia con determinadas fosfotirosinas de los RTK activados. Por tanto, la activación de los RTK puede promover la activación de Ras mediante la acción adaptadora de Grb2 y SOS.
Las proteínas adaptadoras, que contienen dominios SH2 y SH3, conectan proteínas fosforiladas en tirosina con otras proteínas que no poseen dominios SH2 propios. De este modo, ayudan a acoplar los receptores activados con Ras.
Ras actúa como un transductor y una proteína de bifurcación de señales. Cambia la naturaleza de la señal y la distribuye por múltiples vías posteriores, incluida una vía principal que puede estimular la proliferación o la diferenciación celular.
Una característica funcional común de muchas GTPasas monoméricas es la activación en cascada de una serie de tres cinasas dirigidas a serina o treonina. La última cinasa de la serie es una cinasa activada por mitógenos, conocida como MAPK.
MAPK se activa mediante fosforilación por una cinasa de MAPK, denominada MAPKK. La MAPKK se activa después de ser fosforilada por una cinasa de MAPKK, denominada MAPKKK.
| Nivel de la cascada | Proteína en la vía de Ras | Función |
|---|---|---|
| MAPKKK | Raf | Fosforila y activa MEK1 o MEK2 |
| MAPKK | MEK1 o MEK2 | Fosforila y activa ERK1 o ERK2 |
| MAPK | ERK1 o ERK2 | Regula funciones citoplasmáticas, nucleares y el ciclo celular |
En la vía de Ras, Raf es la MAPKKK, MEK1 o MEK2 es la MAPKK y ERK1 o ERK2 es la MAPK. ERK1 y ERK2 suelen funcionar de manera redundante, por lo que a menudo se denominan conjuntamente ERK1/2.
Efectos de ERK1/2
ERK1/2 transmite señales tanto en el citoplasma como en el núcleo. Entre sus funciones más importantes, ERK1/2 es un regulador principal del ciclo celular.
La actividad de ERK1/2 resultante de la activación de los RTK por factores de crecimiento promueve la proliferación celular y el crecimiento y la reparación de los tejidos.
ERK1/2 también reduce la muerte celular. La disminución de la muerte celular aumenta la capacidad de una proliferación celular elevada para incrementar la masa tisular.
La activación constitutiva de ERK1/2 es el principal impulsor de la proliferación celular en la mayoría de los cánceres. La combinación de proliferación elevada y reducción de la muerte celular contribuye al efecto tumorigénico de ERK1/2 activada de forma persistente.
Cuando se inhibe la función de Ras mediante anticuerpos neutralizantes o una forma mutante dominante negativa, no se producen las respuestas de proliferación o diferenciación que normalmente inducen los RTK activados. Por el contrario, en algunas líneas celulares, la introducción de una proteína Ras mutante hiperactiva puede producir efectos sobre la proliferación o la diferenciación similares a los provocados por la unión de ligandos a receptores de superficie.
Más del 30 % de las neoplasias humanas presentan una mutación hiperactiva de ras. Las mutaciones de Ras que mantienen la proteína en el estado activo favorecen el crecimiento tumoral.
Vía PI3K-Akt y supervivencia celular
Algunos residuos de fosfotirosina de los RTK se unen y activan la fosfatidilinositol 3-cinasa, conocida como PI3K, lo que desencadena otra secuencia de cinasas.
La PI3K añade un grupo fosfato adicional al fosfatidilinositol-4,5-bisfosfato, denominado PIP2, y produce fosfatidilinositol-3,4,5-trifosfato, denominado PIP3.
La proteína cinasa Akt es reclutada a la membrana plasmática mediante su unión a PIP3. Esta localización permite que Akt sea fosforilada y activada por varias cinasas asociadas a la membrana.
Akt activada controla funciones citoplasmáticas y nucleares. La PI3K promueve la supervivencia celular mediante la activación indirecta de la proteína cinasa B, también denominada PKB o Akt.
Akt posee un dominio PH que la dirige a la membrana plasmática cuando una señal extracelular de supervivencia activa la PI3K. Al unirse a PI(3,4,5)P3 en la cara citosólica de la membrana, PKB experimenta un cambio conformacional que permite su activación.
La activación de PKB requiere fosforilación por la proteína cinasa dependiente de fosfatidilinositol PDK1, que también es atraída a la membrana.
Una vez activada, PKB se transloca al citoplasma y fosforila varias proteínas diana. Una de ellas, denominada BAD, promueve normalmente la muerte celular programada o apoptosis.
Al fosforilar BAD, PKB la inactiva y favorece la supervivencia celular. PKB también aumenta la supervivencia al inhibir diversos activadores de la muerte celular, en ocasiones mediante la inhibición de la transcripción de los genes que codifican dichos activadores.
Señalización del receptor de insulina
Los receptores de insulina y del factor de crecimiento similar a la insulina 1 actúan de una manera ligeramente diferente. Son tetrámeros desde el principio y se considera que la unión del ligando induce una reordenación de las cadenas transmembrana del receptor, aproximando los dos dominios cinasa.
La insulina activa primero los dominios cinasa del receptor, que se autofosforilan y después fosforilan en múltiples tirosinas una proteína de acoplamiento especializada denominada sustrato del receptor de insulina 1, IRS-1.
La fosforilación de IRS-1 genera muchos más sitios de anclaje de los que podrían acomodarse en el propio receptor. El IRS-1 se une a la PI3K y la activa.
Los receptores de insulina median la captación de glucosa mediante la activación de la translocación de GLUT4 hacia la membrana celular. También promueven el metabolismo de la glucosa y la síntesis de glucógeno mediante la activación de la vía PI3K-Akt.
El funcionamiento defectuoso de estos receptores contribuye a la resistencia a la insulina en la diabetes.
Vía de la fosfolipasa C-γ
Algunos residuos de fosfotirosina de los RTK se unen y activan la isoforma gamma de la fosfolipasa C, denominada PLC-γ.
La PLC activada por los RTK y la PLC activada por los GPCR son productos de genes diferentes, pero catalizan la misma reacción: escinden el lípido PIP2 y producen los segundos mensajeros IP3 y DAG.
El IP3 se une a receptores de canales de calcio situados en la membrana del retículo endoplasmático y provoca la liberación de Ca2+. El DAG difunde por la membrana plasmática y puede activar formas localizadas en la membrana de la proteína cinasa C, denominada PKC.
El aumento del calcio citoplasmático y la activación de PKC modifican la actividad de numerosas proteínas y producen una amplia variedad de respuestas celulares.
La convergencia observada en la PLC de las vías de señalización de GPCR y RTK representa una forma de conexión funcional entre ambas rutas.
Interacción entre RTK y GPCR
Las vías celulares que controlan funciones similares pueden conectarse para coordinar sus actividades. La señalización de los receptores ligados a cinasas no funciona de manera aislada y puede integrarse con rutas activadas por receptores acoplados a proteínas G.
Transactivación del receptor del factor de crecimiento epidérmico
El receptor del factor de crecimiento epidérmico es un RTK activado por diversos factores de crecimiento.
Algunos ligandos del receptor del factor de crecimiento epidérmico son liberados por las células mediante secreción vesicular. Otros, como HB-EGF, se expresan inicialmente como proteínas integrales de membrana que deben ser escindidas proteolíticamente por ADAM17 para liberar el péptido ligando extracelular activo.
Las vías de GPCR que activan Gi y Gq activan ADAM17. Por tanto, los ligandos de los GPCR pueden provocar con frecuencia la activación del receptor del factor de crecimiento epidérmico.
Activación de receptores Trk
La familia Trk de RTK funciona como receptora de los factores de crecimiento de la familia del factor de crecimiento nervioso, conocidos como neurotrofinas.
Los GPCR que activan la vía de señalización AMPc/PKA provocan la fosforilación y activación de Fyn, una proteína cinasa. Fyn activada se une al receptor de neurotrofinas TrkB e induce su señalización incluso en ausencia de neurotrofinas.
Receptores asociados a tirosina cinasas y vía JAK-STAT
Los receptores asociados a tirosina cinasas son proteínas transmembrana que carecen de actividad enzimática intrínseca, pero se asocian mediante enlaces no covalentes con tirosina cinasas citoplasmáticas.
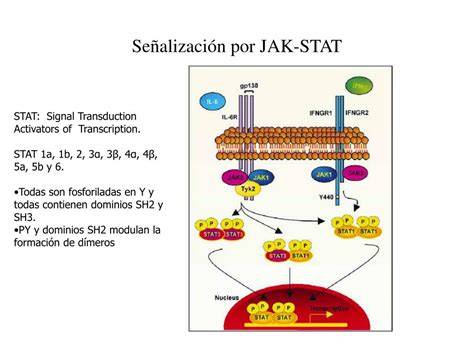
Los receptores de citocinas suelen conectarse con cinasas Janus citoplasmáticas, denominadas JAK, en lugar de poseer una actividad cinasa intrínseca.
Los receptores de citocinas están formados por múltiples cadenas polipeptídicas. Algunas cadenas se comparten entre varios receptores, mientras que otras son específicas de un receptor. Una o más JAK están asociadas a cada receptor de citocinas.
Se reconocen cuatro JAK: JAK1, JAK2, JAK3 y Tyk2. Cada una de estas proteínas se asocia con determinados receptores de citocinas.
Por ejemplo, JAK1 y Tyk2 se asocian con los receptores de interferón alfa, mientras que JAK1 y JAK2 se asocian con los receptores de interferón gamma. La eritropoyetina actúa a través de un receptor asociado únicamente con JAK2.
La unión de una citocina provoca la dimerización del receptor, lo que permite que las JAK fosforilen residuos de tirosina del receptor. Después, las proteínas STAT se unen a los residuos fosforilados y son fosforiladas por las JAK.
Las STAT unidas a la superficie celular se fosforilan, se dimerizan y se separan del receptor. A continuación, los dímeros STAT entran en el núcleo y activan la expresión génica.
El sistema JAK-STAT regula numerosas actividades biológicas, incluida la producción y liberación de mediadores inflamatorios, el crecimiento, el desarrollo y la homeostasis. También regula la activación, diferenciación y producción de citocinas por las células inmunitarias.
Receptores serina/treonina cinasa
Los receptores serina/treonina cinasa son péptidos de una sola cadena con un gran dominio extracelular que contiene una región rica en cisteína, un dominio transmembrana y un dominio citoplasmático.
El dominio citoplasmático contiene dos secuencias separadas homólogas a otras cinasas de serina y treonina. En estos receptores, la autofosforilación se produce en residuos de serina o treonina.
Un ejemplo importante es el receptor de la superfamilia del factor de crecimiento transformante beta, TGF-β, que desempeña un papel destacado en el desarrollo.
Los receptores de TGF-β controlan la diferenciación celular, la formación de matriz extracelular y la remodelación de los tejidos.
Receptores unidos a guanilato ciclasa
Los receptores unidos a guanilato ciclasa producen una clase específica de segundos mensajeros en respuesta a la unión de agonistas.
Los miembros de esta familia incluyen los receptores de los péptidos natriuréticos: el péptido natriurético auricular, el péptido natriurético cerebral y el péptido natriurético tipo C.
El dominio de unión al ligando se encuentra en el extremo extracelular amino-terminal. Una breve región transmembrana fija la proteína receptora a la membrana celular.
El dominio intracelular contiene un dominio homólogo a proteína cinasa y un dominio catalítico de guanilato ciclasa. El primero controla y transmite la activación del receptor al dominio catalítico, mientras que el segundo participa en la síntesis de GMP cíclico a partir de GTP.
La guanilato ciclasa cataliza la conversión de GTP en el segundo mensajero GMP cíclico, denominado cGMP. El cGMP se une y activa una cinasa dependiente de cGMP, que fosforila residuos de serina y treonina en determinadas proteínas.
El péptido natriurético auricular es liberado por la aurícula del corazón en respuesta a una presión arterial elevada. Su acción estimula a los riñones a excretar sodio y agua y provoca la relajación del músculo liso de las paredes vasculares.
Además de la forma particulada asociada a membrana, existe una forma soluble intracelular de guanilato ciclasa. La actividad de la enzima soluble requiere las subunidades alfa y beta, que forman un heterodímero.
La guanilato ciclasa soluble es activada por el óxido nítrico, donadores de óxido nítrico como el nitroprusiato de sodio y la nitroglicerina, y otros mediadores.
Las guanilato ciclasas y las cascadas de señalización mediadas por cGMP regulan numerosos procesos fisiopatológicos.
Receptores tirosina fosfatasa
Los receptores tirosina fosfatasa eliminan grupos fosfato de las tirosinas de proteínas específicas de señalización intracelular.
La desfosforilación de proteínas señalizadoras permite limitar, ajustar o reorientar la intensidad y la duración de las señales iniciadas por receptores ligados a cinasas.
Funciones fisiológicas principales
Los receptores ligados a cinasas desempeñan un papel esencial en la comunicación celular porque convierten información procedente del exterior de la célula en respuestas internas.
- Regulan la proliferación y la división celular mediante las vías Ras-MAPK y PI3K-Akt.
- Controlan la diferenciación y la maduración de distintos tipos celulares.
- Favorecen la supervivencia celular y pueden inhibir la apoptosis.
- Participan en el crecimiento y la reparación de los tejidos.
- Regulan la migración, la adhesión y los cambios de forma celular.
- Controlan la respuesta inmunitaria y la producción de mediadores inflamatorios.
- Regulan el metabolismo de la glucosa y la síntesis de glucógeno mediante el receptor de insulina.
- Participan en el desarrollo neuronal, la supervivencia de las neuronas, el crecimiento axonal y la fuerza sináptica.
- Controlan la formación de matriz extracelular y la remodelación de los tejidos.
- Regulan la diuresis mediante la señalización de los péptidos natriuréticos y el cGMP.
Funciones en el sistema nervioso
Se han identificado más de veinte tipos de receptores tirosina cinasa relacionados con moléculas tróficas, que promueven la diferenciación o la maduración celular.
Los receptores de neurotrofinas participan en el crecimiento neuronal. Los receptores MuSK intervienen en la formación y el mantenimiento de la unión neuromuscular, especialmente en la organización de los receptores ionotrópicos postsinápticos de acetilcolina y de la zona activa presináptica.
Los receptores Eph para efrinas participan en señales bidireccionales entre células pre y postsinápticas en la sinapsis.
Los receptores Trk son receptores de tropomiosina cinasa para neurotrofinas como BDNF y NGF. Favorecen la supervivencia neuronal, el crecimiento axonal y la fuerza sináptica.
Receptores ligados a cinasas y cáncer
Los trastornos de la proliferación, la diferenciación, la supervivencia y la migración celular son acontecimientos fundamentales que pueden originar cáncer. Las alteraciones de la señalización a través de receptores ligados a enzimas desempeñan un papel importante en estas enfermedades.
Las versiones mutantes de receptores ligados a enzimas pueden presentar un sitio catalítico permanentemente activo o asociarse con una proteína cinasa no receptora de manera anómala.
Las mutaciones que activan la vía de Ras y estimulan inadecuadamente la división celular son factores causales de numerosos tipos de cáncer.
La activación constitutiva de ERK1/2 impulsa la proliferación celular en la mayoría de los cánceres. La reducción simultánea de la muerte celular favorece el aumento de la masa tisular y contribuye al efecto tumorigénico.
Ras se identificó inicialmente como el producto hiperactivo de un gen ras mutante que favorecía el desarrollo del cáncer. Ras hiperactiva permanece en el estado unido a GTP y estimula continuamente las vías de proliferación.
La señalización persistente de PI3K-Akt también puede favorecer la supervivencia tumoral porque Akt inactiva proteínas proapoptóticas como BAD.
Las alteraciones de los receptores y de sus vías posteriores pueden convertir señales fisiológicas de crecimiento, supervivencia o reparación en estímulos continuos de expansión celular.
Importancia de la amplificación y la regulación de la señal
Las señales químicas del organismo suelen implicar concentraciones muy bajas de moléculas señalizadoras. Para traducir cambios producidos por unas pocas moléculas en modificaciones importantes de la actividad celular y orgánica, las células emplean secuencias de reacciones químicas.
Cada etapa de una cascada de transducción puede amplificar considerablemente la señal, ya que un número reducido de moléculas puede afectar la producción de muchas moléculas posteriores mediante actividad enzimática.
La activación de un solo receptor puede generar numerosos sitios de anclaje, activar múltiples proteínas y desencadenar varias cascadas en paralelo. Esta organización permite que una señal extracelular controle simultáneamente el metabolismo, el citoesqueleto, la expresión génica, la supervivencia y el ciclo celular.
La misma arquitectura de señalización también explica por qué la activación persistente o desregulada puede producir efectos patológicos. Cuando los mecanismos de inactivación no limitan adecuadamente la señal, las vías Ras-ERK, PI3K-Akt, JAK-STAT o PLC-PKC pueden permanecer activas durante demasiado tiempo.
Por ello, la actividad de los receptores ligados a cinasas debe mantenerse bajo un control estricto mediante desfosforilación, internalización, degradación de receptores, inhibición de proteínas señalizadoras y regulación de la expresión génica.